

Введение
Во многих современных исследованиях рассматриваются факторы, влияющие на мясную продуктивность кур. Изучаются механизмы миогенеза (Bentzinger et al, 2012), участие и влияние конкретных генов на различные сигнальные пути, задействованные в формировании мышц (Li J et al, 2025), а также возможности управления экспрессией генов. Особое внимание уделяется влиянию на мясную продуктивность факторов внешней среды, в том числе кормления (Poompramun et al, 2022) и содержания (Funaro et al, 2014). Генетические исследования являются одним из наиболее передовых способов развития селекции в области мясного птицеводства. Для получения высокой мясной продуктивности необходимо исследовать множество факторов, в том числе экспрессию генов, связанных с продуктивностью. На сегодняшний день обнаружено большое количество кандидатных генов, влияющих на количественные и качественные показатели кур, которые, в свою очередь, связаны с мясной продуктивностью (Luo N et al, 2025).
В результате полногеномного поиска ассоциаций (GWAS, Genome-wide association study) на основании данных полногеномного генотипирования (Illumina Chicken 60K SNP iSelect BeadChip, «Illumina», США) в царскосельской породе кур были выявлены локусы, ассоциированные с показателями мясной продуктивности. Одним из кандидатных генов, ассоциированных с мясной продуктивностью, является ген A4GALT, расположенный на 1-й хромосоме у кур, кодирующий фермент α-1,4-галактозилтрансферазу.
Целью настоящего исследования было изучение влияния экспрессии A4GALT на показатели мясной продуктивности у птицы царскосельской породы. Возможности современной генетики позволяют регулировать экспрессию генов и управлять продуктивностью животных. Однако усложняет задачу то, что геном – многоступенчатая система со сложной регуляторной сетью, проявляющаяся в клетках гетерогенно (Li J et al, 2025). Изучение и понимание этих процессов позволит применять выявленные маркеры в селекционно-генетических программах для модификации уровня продуктивности птицы (или для улучшения продуктивных качеств птицы).
Объекты и методы
Объектом исследования стали курочки и петушки царскосельской породы 35-дневного возраста (n=24, 10 самцов и 14 самок), выведенные и содержащиеся в центре коллективного пользования (ЦКП) «Генетическая коллекция редких и исчезающих пород кур» (ВНИИГРЖ, г. Санкт Петербург – Пушкин).
Сбор фенотипической информации включал в себя следующие показатели мясной продуктивности: живая масса, масса потрошенной тушки (без шеи), масса селезёнки, масса грудных мышц, а также мышц голени и бедра.
Для гистологического анализа тканей мышц (грудные мышцы и мышцы голени левой части тела) получено 48 образцов. Для получения гистологического материала осуществляли декапитацию и обескровливание цыплят, после чего вырезали фрагменты мышц голени и груди размером 1 × 1 см. Образцы фиксировали в 10% растворе нейтрального формалина в соотношении 1:10 в течение не менее 24 часов для предотвращения аутолиза и сохранения прижизненного состояния клеток. Фиксированный материал подвергали стандартной гистологической обработке с этапами промывки в проточной воде, проводке в гистопроцессоре TLP-720 (ООО «МедТехникаПоинт», Россия) с использованием изопропилового спирта (дегидратация, обезжиривание) и парафина (пропитка). Затем фрагменты тканей заливали в парафин на станции заливки ESD-2800 (ООО «МедТехникаПоинт», Россия). Из парафиновых блоков на ротационном автоматическом микротоме RMD-4000 (ООО «МедТехникаПоинт», Россия) изготавливали срезы толщиной 5 мкм, которые расправляли на водяной бане HWB-75 (ООО «МедТехникаПоинт», Россия), монтировали на предметные стекла и высушивали на термостолике HWT-75 (ООО «МедТехникаПоинт», Россия). Депарафинизацию и окрашивание гистологических срезов гематоксилином и эозином (для выявления структуры ткани) проводили с помощью линейного автоматического стейнера ALS-96 (ООО «МедТехникаПоинт», Россия).
Микрофотографии получали при помощи светооптического микроскопа Lacopa NK-310 (Китай) с увеличением объектива ×4, ×20 и окуляра – ×10. Микрофотографирование выполняли с использованием цветной цифровой фотокамеры PC3-HI20M и программного обеспечения ImageView.
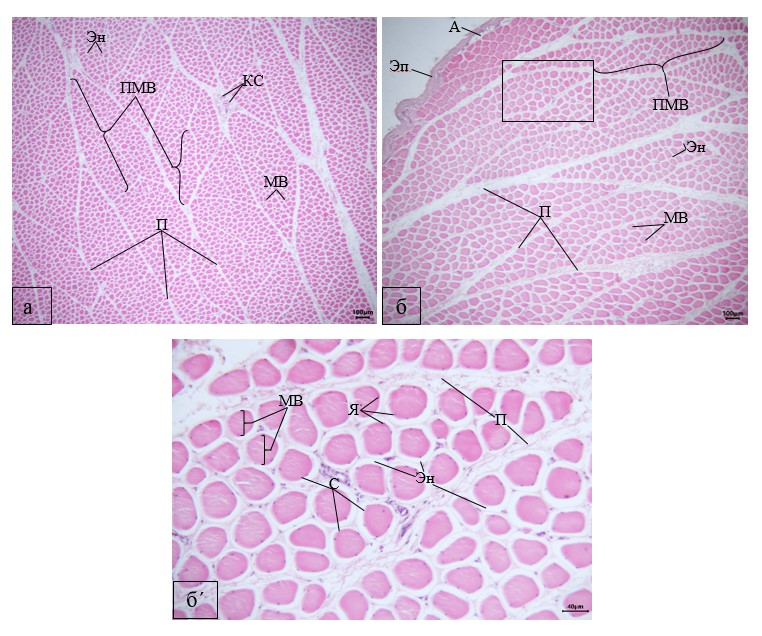
Рис. 1 – Гистологический поперечный срез грудной мышцы (а) и мышцы голени (б) 35-дневного цыпленка, окраска гематоксилином и эозином, ув. ×40. На срезе б рамкой выделен участок, показанный на бʹ. бʹ – увеличенный фрагмент среза б, ув. ×200. Эп – эпимизий; П – перимизий; Эн – эндомизий; ПМВ – пучки мышечных волокон; МВ – мышечные волокна; КС – кровеносные сосуды А – адипоциты; Я – ядра мышечного волокна; С – сарколемма, покрытая базальной мембранной. В грудных мышцах пучки ʹмышечных волокон плотно прилежат друг к другу, перимизий тонкий. В мышцах голени перимизий несколько шире, однако признаки жировой инфильтрации между мышечными волокнами отсутствуют. Имеются небольшие скопления адипоцитов между пучками мышечных волокон в перимизии и под эпимизием.
Морфометрические измерения гистологических препаратов (площадь поперечного сечения мышечного пучка и диаметр мышечных волокон) проводили вручную в программе ImageView (рис. 1). Для каждого образца случайным образом выбирали 3 мышечных пучка, а в каждом пучке – 10 отдельных волокон. Всего проанализировано 48 образцов, что составило 144 мышечных пучка и 1440 мышечных волокон для грудной мышцы и голени (по 72 пучка и 720 волокон на каждый тип мышцы). Показатель плотности мышечных волокон в пучке (долю площади пучка, занимаемую мышечными волокнами) рассчитывали вручную по формуле:
Пл = \( \frac{π\left(\frac{d}{2}\right)^{2}⋅n}{S\text{пучка}} \), где
Пл – плотность мышечных волокон в пучке (доля площади пучка, занимаемая волокнами); d – средний диаметр мышечного волокна в пучке, мкм; n – количество мышечных волокон в пучке; Sпучка – площадь поперечного сечения мышечного пучка, мкм2.
В качестве биологического материала для выделения РНК были использованы образцы тканей большой грудной мышцы, печени и мышцы сердца. Образцы ткани немедленно помещали в стабилизатор РНК (ООО «Биолабмикс», Россия) и хранили при -80℃. РНК выделяли коммерческим набором «Реагент «Лира»» (ООО «Биолабмикс», Россия). Выделение РНК из тканей проводилось по стандартной методике. Концентрацию суммарной РНК в образцах определяли на спектрофотометре NanoDrop 2000с (Thermo Fisher Scientific, США). Средние значения варьировали в зависимости от типа ткани и были в пределах 350-800 нг/мкл. Для экспрессии полученные концентрации дополнительно были разведены до концентраций в 100 нг/мкл.
Уровень относительной экспрессии определяли реагентами набора «Обратная транскриптаза M-MuLV–RH» (ООО «Биолабмикс», Россия) и «БиоМастер ОТ-ПЦР SYBR Blue (2×)» (ООО «Биолабмикс», Россия) на амплификаторе в реальном времени CFX96 Touch (Bio-Rad, США).
Дизайн олигонуклеотидов-праймеров для РТ-ПЦР в реальном времени проводился на основании информации баз данных сети Интернет (www.nlm.ncbi.nih.gov и www.ensembl.org) при помощи компьютерной программы PRIMER_INPUT_3 (www-genome.wi.mit.edu). Проверка полученных последовательностей праймеров на специфичность и отсутствие возможной внутригеномной гомологии проведена при помощи пакета программ «Электронный ПЦР» и BLAST (www.ncbi.nlm.nih.gov) с варьирующими параметрами величины окна, допустимого процента идентичности пар оснований, фильтрации повторов.
Реакции проводили на амплификаторе в реальном времени CFX96 Touch (Bio-Rad, США). Для анализа экспрессии и были сконструированы следующие праймеры в том числе и 8 референтных.
1.CLSPN: F: AACTTAAGGTGAGGCGGGG; R:TACGGCAAAGCCGCCTAAA
2. ACTB: F: TTGGCGCTTGACTCAGGATT; R: CCCCCACATACTGGCACTTT
3. GAPDH: F: CTATCTTCCAGGAGCGTGACC; R: TTTCCCCACAGCCTTAGCAG
4. MPP1: F: GGCCAAGCACAGCTCAATTT; R: AGAGCGTTCTTGATGTGGCT
5.TBP1: F: TAGCCCGATGATGCCGTAT; R: GTTCCCTGTGTCGCTTGC
6. HMBS: F: GGCTGGGAGAATCGCATAGG; R:TCCTGCAGGGCAGATACCAT
7.ADA: F: TATCAACACCGATGACCCCC; R: GCTGGACTGAGCTGCATTGA
8. RPL52: F:CTTGACTTCTCTCTTGGGTTTCT; R:AATATAACGCCTGATGGGATGG
9. MRPS272: F: CTCCTCAATGCGGTGACCT; R: ATCACCTGCAAGGCTCTATTT
В качестве реферативного гена из 8 генов домашнего хозяйства был отобран ген ACTB, поскольку его экспрессия имела близкое значение к уровню экспрессии изучаемого гена A4GALT (Таблица 1), что имеет существенное значение для получения достоверных результатов анализа уровня экспрессии. Расчет экспрессионных изменений гена A4GALT выполняли методом ddCt (delta delta Cycle threshold) (Livak K.J. and Schmittgen T.D., 2001).
Таблица 1 – Последовательность праймеров для генов и режим амплификации
| Ген | Олигонуклеотидная последовательность | Режим ПЦР-РВ |
|---|---|---|
| A4GALT | F-TGAGCACCACAACCCTTGTC R-CAGGACTCTAAGGGCAGGGA | 95°С, 5 мин, 95°С, 30 с, 60°С, 30 с, 40× 72°С, 30 с. |
| ACTB | F-ACCCCAAAGCCAACAGA R-CCAGAGTCCACAATACC |
Расчет и визуализация результатов корреляции проводился по Спирмену с использованием библиотеки corrplot в R. Перерасчет корреляций с учетом множественной ошибки (FDR) произведен с использованием среды R.
Результаты и обсуждение
Уровень экспрессии гена A4GALT различный у кур и петухов. У кур наибольший уровень экспрессии выявлен в тканях сердца – 6,64±2,13, у петухов – в тканях большой грудной мышцы – 3,13±1,35 (табл. 2). Таким образом, с показателями мясной продуктивности в 35-дневном возрасте птицы наиболее тесно связана экспрессия гена A4GALT в сердце (у курочек) и в грудной мышце (у петушков). Следовательно, данные корреляции с экспрессией в указанных тканях представляют наибольший интерес и целесообразно их считать в качестве приоритетных.
Таблица 2 – Средние значения экспрессии гена A4GALT, выделенного из различных тканей курочек и петушков
| Показатель | Самки (n=14) | Самцы (n=11) | ||||||
|---|---|---|---|---|---|---|---|---|
| Mean±SE | Med | Min | Max | Mean±SE | Med | Min | Max | |
| Экспрессия A4GALT в тканях: | ||||||||
| Грудных мышц | 0,25±0,13 | 0,06 | 0,007 | 1,8 | 3,13±1,35 | 1,58 | 0,08 | 15,4 |
| Печени | 0,95±0,23 | 0,74 | 0,15 | 2,5 | 0,89±0,26 | 0,57 | 0,18 | 2,39 |
| Сердца | 6,64±2,13 | 2,45 | 0,003 | 22,2 | 1,16±0,38 | 0,83 | 0,14 | 4,46 |
Корреляции экспрессии гена A4GALT в тканях сердца с показателями мясной продуктивности у курочек и в тканях грудных мышц – у петушков, представлены в таблице 3.
Таблица 3 - Корреляции экспрессии гена A4GALT в тканях сердца с показателями мясной продуктивности у курочек и в тканях грудных мышц – у петушков
| Признак | Коэффициент корреляции | |
|---|---|---|
| экспрессия гена A4GALT в тканях: | ||
| сердца | грудных мышц | |
| Пол | куры | петухи |
| живая масса | -0,38* | 0,51* |
| масса товарной тушки | -0,43* | 0,53* |
| Масса селезенки, г | 0,01 | -0,74* |
| Масса мышц бедра | -0,77* | 0,48* |
| Масса мышц голени | -0,2 | 0,19 |
| Масса грудных мышц | -0,57* | 0,66* |
| Угол груди | -0,74* | 0,03 |
| Голени: | ||
| Средняя S мышечного пучка в образце, мкм2 | -0,07 | 0,24 |
| Среднее количество мышечных волокон в пучке образца, шт. | -0,2 | -0,59* |
| Средний d мышечных волокон в пучке образца, мкм | -0,1 | 0,42* |
| Груди: | ||
| Средняя S мышечного пучка в образце, мкм2 | 0,3* | 0,58* |
| Среднее количество мышечных волокон в пучке образца, шт. | 0,2* | 0,11 |
| Средний d мышечных волокон в пучке образца, мкм | -0,37* | 0,08 |
Примечание: S – площадь, d – диаметр, показатели со * достоверны с р>0,05
В результате анализа полученных данных выявлены следующие закономерности. У курочек отмечена высокая отрицательная корреляция между экспрессией A4GALT в тканях сердца и массой мышцы бедра (r = -0,77), с углом груди (r = -0,74).
Установлена умеренная отрицательная корреляция экспрессии A4GALT в тканях сердца курочек с живой массой (r = -0,38) и массой товарной тушки (r = -0,43), а также и заметная отрицательная корреляция с массой грудных мышц (r = -0,57). Гистоморфометрические показатели грудной мышцы слабо коррелируют с экспрессией A4GALT (r = 0,07), а достоверных корреляционных связей плотности мышечных волокон в пучке и живой массы с уровнем экспрессии гена не выявлено.
Таким образом, можно сделать вывод, что повышение экспрессии гена A4GALT в сердце у курочек может отрицательно влиять на показатели мясной продуктивности, при этом не изменяя (или изменяя незначительно) плотность мышц. Подтверждает полученный результат и поправка на множественную ошибку. В результате корреляционного анализа с применением поправки FDR обнаружены достоверные отрицательные корреляции экспрессии A4GALT с массой мышц груди, массой мышц бедра, углом груди и массой селезенки (Рисунок 2).
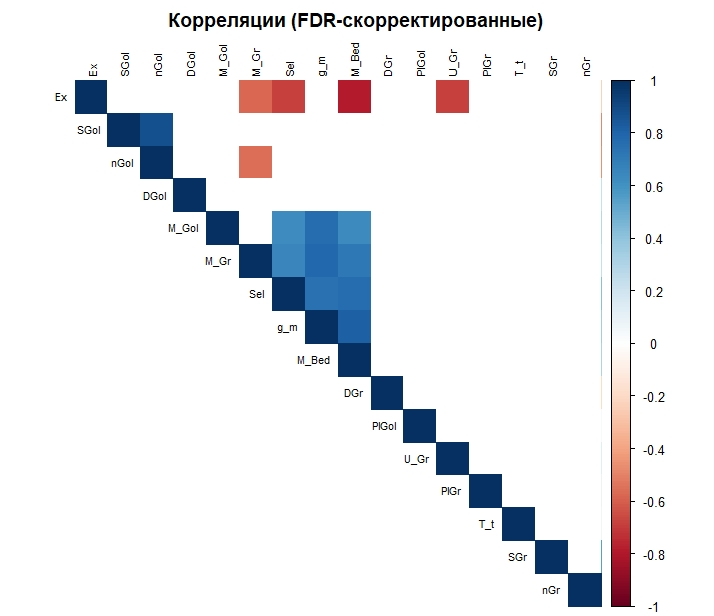
Рис. 2 - корреляционная пирамида с поправкой на множественную ошибку, где Ex – экспрессия гена A4GALT, SGol - средняя площадь мышечного пучка в образце голени, nGol - среднее количество мышечных волокон в пучке образца голени, DGol - средний диаметр мышечных волокон в пучке образца голени, M_Gol- масса мышцы голени, M_Gr - масса мышцы груди, Sel - масса селезёнки, g_m – живая масса, M_Bed - масса мышцы бедра, DGr - средний диаметр мышечных волокон в пучке образца груди, PlGol - плотность мышечных волокон в пучке мышцы голени, U_Gr- угол груди, PlGr- плотность мышечных волокон в пучке мышцы груди, T_t – масса товарной тушки без шеи, SGr - средняя площадь мышечного пучка в образце груди, nGr – среднее количество мышечных волокон в пучке образца груди.
Корреляционный анализ экспрессии гена A4GALT в грудных мышцах петушков выявил заметные положительные корреляции с живой массой (r = 0,51), массой товарной тушки (r = 0,53), массой мышцы груди (r = 0,66). Также экспрессия A4GALT в грудных мышцах петухов отрицательно коррелирует с массой селезёнки (r = -0,74). Последняя, в свою очередь, достоверно отрицательно связана с показателями мясной продуктивности: с массой тушки (r = -0,48), массой грудных мышц (r = -0,86). Прослеживается умеренная положительная корреляция экспрессии A4GALT в грудных мышцах петухов с массой мышц бедра (r = 0,48) и со средней площадью мышечного пучка в грудных мышцах (r = 0,58). Отрицательная корреляция обнаружена между экспрессией A4GALT и средним количеством мышечных волокон в пучке мышц голени (r = -0,59), тогда как с диаметром мышечных волокон голени отмечена умеренно положительная корреляция (r = 0,42). Однако после поправки на множественные сравнения эти данные подтверждаются неполностью. На большей выборке будут сохраняться только отрицательная корреляция экспрессии A4GALT с массой селезенки (r < [-0,8; -1]).
Таким образом, экспрессия A4GALT у петушков отрицательно связана с плотностью мышечных волокон в пучке и положительно связана с мясной продуктивностью. Функциональная роль гена требует дополнительных исследований, однако полученные данные позволяют выдвинуть несколько предположений о природе данных взаимосвязей.
Снижение плотности мышечных волокон может быть обусловлено различными механизмами. С одной стороны, уменьшение доли мышечных волокон в пучке может происходить за счёт замещения её жировой тканью, что способствует снижению жёсткости и повышению нежности мяса. С другой стороны, аналогичное снижение плотности может быть следствием патологических процессов, например, миопатических, при которых происходит сокращение доли мышечных волокон в мышечном пучке и заполнение освободившегося пространства соединительной тканью, что ухудшает качество мяса. Развитие миопатии разной степени выраженности при высокой мышечной массе связывают с гипоксией мышечных волокон, обусловленной недостаточным поступлением к ним кислорода.
В настоящем исследовании между мышечными волокнами адипоциты не были обнаружены, однако это не позволяет однозначно исключить наличие мелкокапельной жировой инфильтрации. Следовательно, для определения указанных выше механизмов необходимы дальнейшие гистохимические исследования на липиды (например, Судан чёрный) и соединительную ткань (например, трихром по Маллори или по Ван-Гизону). Чтобы подтвердить или опровергнуть данную гипотезу необходимы дальнейшие исследования состава образцов ткани, взятых из мышц птицы.
Кроме того, уровень экспрессии A4GALT в разных органах может меняться с возрастом. Наше исследование проведено на курочках и петушках 35-дневного возраста, что позволяет оценивать мясную продуктивность на ранних этапах развития, однако требуются дополнительные исследования в более позднем возрасте, поскольку активность гена может меняться, усиливая или ослабляя свое влияние на мясную продуктивность. При этом эффект может быть как значительным, так и нивелироваться условиями внешней среды или работой других генов.
Заключение
Настоящее исследование выявило различия между влиянием экспрессии A4GALT в ткани сердца кур и ткани большой мышцы груди петухов на мясную продуктивность. Корреляционный анализ показал достоверную отрицательную взаимосвязь экспрессии A4GALT в сердце кур с живой массой (r = -0,38), массой товарной тушки (r = -0,43), а также массой бедренных (r = -0,77) и грудных мышц (r = -0,57). У петухов, напротив, экспрессия A4GALT в грудной мышце положительно коррелировала с этими показателями (r = 0,51, 0,53, 0,48, и 0,66, соответственно) и умеренно отрицательно – с плотностью волокон в пучке (r = -0,52). Полученные результаты дают основу для дальнейших исследований не только количества, но и качества производимой продукции, включая гистохимический анализ и оценку органолептических свойств мяса. Рекомендуется изучение возрастной динамики экспрессии A4GALT и ее влияния на другие физиологические процессы. Практическое значение настоящего исследования может заключаться в использовании экспрессии данного гена в качестве раннего прогностического маркера мясной продуктивности.
Благодарности и финансирование
Работа проведена в рамках выполнения научных исследований Министерства науки и высшего образования РФ по теме № 124020200114-7.
Список источников
- Bentzinger CF, Wang YX, Rudnicki MA. Building muscle: molecular regulation of myogenesis. Cold Spring Harb Perspect Biol. 2012 Feb 1;4(2):a008342. doi: 10.1101/cshperspect.a008342. PMID: 22300977; PMCID: PMC3281568.
- E Dransfield, AA Sosnicki, Relationship between muscle growth and poultry meat quality, Poultry Science, Volume 78, Issue 5, 1999, Pages 743-746, ISSN 0032-5791, https://doi.org/10.1093/ps/78.5.743. (https://www.sciencedirect.com/science/article/pii/S0032579119410006)
- İpek E, Ahsan U, Özsoy B, Ekren Aşıcı GS, Tatar M, Özpilavcı BN, Epikmen ET, Özsoy ŞY, Khamseh EK, Petracci M. Endoplasmic reticulum stress and associated apoptosis are linked with the pathogenesis of white striping in broiler breast muscles. Poult Sci. 2024 Oct;103(10):104103. doi: 10.1016/j.psj.2024.104103. Epub 2024 Jul 16. PMID: 39094495; PMCID: PMC11345576.
- Funaro A, Cardenia V, Petracci M, Rimini S, Rodriguez-Estrada MT, Cavani C. Comparison of meat quality characteristics and oxidative stability between conventional and free-range chickens. Poult Sci. 2014;93(6):1511-1522. doi:10.3382/ps.2013-03486
- Gioftsidi S, Relaix F, Mourikis P. The Notch signaling network in muscle stem cells during development, homeostasis, and disease. Skelet Muscle. 2022;12(1):9. Published 2022 Apr 22. doi:10.1186/s13395-022-00293-w
- Gu S, Huang Q, Jie Y, Sun C, Wen C, Yang N. Transcriptomic and epigenomic landscapes of muscle growth during the postnatal period of broilers. J Anim Sci Biotechnol. 2024;15(1):91. Published 2024 Jul 4. doi:10.1186/s40104-024-01049-w
- Li J, Yang D, Chen C, et al. Single-cell RNA transcriptome uncovers distinct developmental trajectories in the embryonic skeletal muscle of Daheng broiler and Tibetan chicken. BMC Genomics. 2025;26(1):187. Published 2025 Feb 24. doi:10.1186/s12864-025-11363-w
- Luo N, Cai K, Wei L, Cui H, Wen J, An B, Zhao G. Identification of regulatory loci and candidate genes related to body weight traits in broilers based on different models. BMC Genomics. 2025 May 20;26(1):513. doi: 10.1186/s12864-025-11651-5. PMID: 40394511; PMCID: PMC12093760.
- Poompramun C, Mignon-Grasteau S, Juanchich A, et al. Phenotypic correlations between feed efficiency, growth, and meat quality of slow-growing chickens. Br Poult Sci. 2022;63(6):742-746. doi:10.1080/00071668.2022.2094218
- Sosnówka-Czajka E, Skomorucha I, Obremski K, Wojtacha P. Performance and meat quality of broiler chickens fed with the addition of dried fruit pomace. Poult Sci. 2023;102(6):102631. doi:10.1016/j.psj.2023.102631
- Yang B, Li X, Badran AMM, Abdel-Moneim AE. Effects of dietary incorporation of Radix rehmanniae praeparata polysaccharide on growth performance, digestive physiology, blood metabolites, meat quality, and tibia characteristics in broiler chickens. Poult Sci. 2023;102(12):103150. doi:10.1016/j.psj.2023.103150
- Livak K.J. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. / K.J. Livak, T.D. Schmittgen // Methods. - 2001. – Vol. 25. – p. 402-408. doi: 10.1006/meth.2001.1262.
Статья поступила в редакцию 10 июня 2026 г.
Поступила после доработки 24 июня 2026 г.
Принята к печати 28 июня 2026 г.
Received 10, June, 2026
Revised 24, June, 2026
Accepted 28, June, 2026