

Введение
Сахарная свекла – важная техническая культура, на долю которой приходится около 40% мирового производства сахара. Получение современных гибридов сахарной свёклы, состоящих как минимум из трёх компонентов, основано на сложной схеме скрещиваний: выровненная мужски стерильная (МС) линия, поддерживаемая линией О-типа, скрещивается с линией-опылителем. При производстве семян коммерческих гибридов необходимо контролировать все родительские линии гибрида, использующиеся для получения как промежуточных, так и финального гибрида (Шалаева и др., 2023).
Процесс семеноводства включает в себя три основных звена: 1) воспроизводство компонентов: первичное (оригинальное или предбазисное) семеноводство; 2) размножение предбазисных семян до категории базисных семян (элитное семеноводство); 3) воспроизводство гибридных семян F1 путём гибридизации семенных растений на втором году жизни в соответствии с методикой, а также предпосевная обработка гибридных (коммерческих) семян на семенных заводах (Балков и др., 2017). На каждом из вышеперечисленных этапов крайне важно точное воспроизводство генотипа растений, ранее подобранных и проверенных на совместимость и комбинационную ценность компонентов гибрида.
Традиционные методы оценки, основанные на морфологических признаках, обладают принципиальными ограничениями: фенотипическое проявление признаков варьирует в зависимости от стадии развития растения и условий окружающей среды, тогда как доступный набор маркеров остаётся крайне ограниченным по сравнению с уровнем сложности генома. (Шалаева и др., 2024а). Использование молекулярно-генетического анализа в дополнение к оценке по фенотипическим признакам позволит осуществлять надёжный контроль генетической однородности и гомогенности родительских линий-компонентов гибридов сахарной свеклы, используемых при производстве семян. Одним из наиболее эффективных методов для этого является микросателлитный анализ, обеспечивающий получение уникального цифрового ДНК-профиля для каждого растения (Шалаева и др., 2024б).
Целью данной работы было показать применение микросателлитного анализа в технологическом процессе создания линий и первичного семеноводства линий-компонентов гибридов сахарной свеклы.
Объекты и методы. Сахарная свекла не является облигатным перекрестноопылителем, альтернативный способ опыления – самоопыление. Это явление используется при создании самоопыленных линий. Самоопыление (инбридинг) проводится под индивидуальными бязевыми изоляторами (рис. 1А), до 6-8 поколения инбридинга, далее начинается процесс первичного семеноводства родительских линий – этому этапу предшествует молекулярно-генетический анализ, описанный в данной работе. Отобранные гомогенные генотипы размножаются также в строго изолированных условиях под групповыми бязевыми изоляторами или в вегетационных изоляционных кабинах (рис. 1Б).
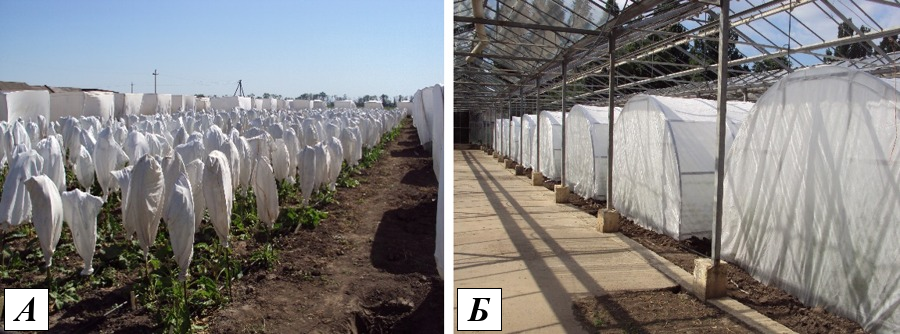
Рис. 1 – Индивидуальная и групповая изоляция растений сахарной свеклы в процессе создания самоопыленных линий и получение оригинальных семян в изолированных условиях
В данном исследовании было проанализировано потомство 11 самоопыленных линий сахарной свеклы (Beta vulgaris L.) после 6-7 поколений инбридинга на разных этапах первичного семеноводства. Биологический материал предоставлен ФГБНУ «Первомайской селекционно-опытной станцией сахарной свеклы» (г. Гулькевичи, Краснодарский край). Каждая линия была представлена 5 образцами сестринских растений первого года (корнеплоды-штеклинги) и 5 проростками семян с этих маточных растений.
Геномную ДНК выделяли из проростков семян и листьев корнеплодов методом экстракции с использованием буфера CTAB (cetyl trimethylammonium bromid; NeoFroxx, Германия) с дополнительной очисткой хлороформом (Doyle, 1987). ДНК в полученных препаратах выявляли методом электрофореза в 1%-ном агарозном геле с последующим окрашиванием бромистым этидием. Определяли качество и измеряли количество выделенной ДНК на спектрофотометре Nano-500 (Allsheng, КНР).
Амплификацию целевых фрагментов ДНК проводили с локус-специфичными праймерами: FDSB1001, FDSB1033 (Richards et al., 2004), SB04, SB09, SB15 (McGrath et al., 2007), Unigene16898, Unigene17623B, Unigene17923, Unigene26753, Unigene27833 (Fugate et al., 2014), меченными флуоресцентными красителями FAM, R6G, TAMRA и ROX. ПЦР проводили в реакционной смеси объемом 25 мкл следующего состава: 67 мМ трис-HCl, pH 8.8, 16.6 мM (NH4)2SO4 (AppliChem, США), 2.5 мМ MgCl2 (AppliChem), 5 ед./мкл Тaq-ДНК-полимеразы (ООО ДНК-Технология, Россия), 25 мМ dNTPs (ООО “Медиген”, Россия), 10 пмоль каждого праймера (ООО Синтол, Россия) и 100 пкмоль геномной ДНК. Амплификацию проводили в термоциклере T100 Thermal Cycler (Bio-Rad, США) по программе: 5 мин при 95oС; 30 циклов [30 c при 94oС, 30 с при 53oС, 30 с при 72oС] и 5 мин при 72oС.
Длины ПЦР-продуктов определяли методом высокоразрешающего капиллярного электрофореза в денатурирующих условиях на генетическом анализаторе ABI PRISM 3130XL (Applied Biosystems, США). Для анализа 1 мкл ПЦР-продукта смешивали с 0.5 мкл маркера молекулярной массы GeneScan™ 600 LIZ (Applied Biosystems) или DSMO-100 Orange-500 DNA Size Standard (Nimagen, Нидерланды) и 9 мкл формамида Super DI (MCLab, CША) и проводили денатурацию фрагментов в течение 5 мин при 95oС. Полученные данные по электрофоретической подвижности фрагментов ДНК обрабатывали с помощью программного обеспечения GeneMapper ID-X (Applied Biosystems, США), устанавливали их длины и получали генетические профили исследуемых образцов.
Результаты и обсуждение
Сахарная свекла является растением с двулетним циклом развития: на первом году жизни из исходных семян получают маточные растения (корнеплоды-штеклинги), на втором – семена. На стадии получения семян сахарной свеклы возможно частичное опыление размножаемых линий чужеродным материалом, что может приводить к изменению генотипа. Следует отметить, что сахарная свекла перекрестноопыляемое растение, опыляется преимущественно ветром, но частично присутствует самоопыление. Пыльца может распространяться на расстояние 4-5 км. Поэтому, учитывая это свойство, а также отсутствие барьера нескрещиваемости между сахарной, кормовой и столовой свеклой, необходимо соблюдать пространственную изоляцию между семенными посевами, семенниками сахарной свеклы, маточными и фабричными посевами (Логвинов, 2020).
При воспроизводстве линий-компонентов крайне важно полное соответствие семян исходному генотипу, чтобы получаемый из них гибрид обладал необходимыми хозяйственно-ценными свойствами. В данном исследовании проводили мониторинг процесса семеноводства 11 линий-компонентов гибридов сахарной свеклы селекции ФГБНУ «Первомайская селекционно-опытная станция сахарной свеклы»: 35481, 37131, 38378, 38384, 41470, 41715, 41737, 41815, 41972, 42660, 42661, – с помощью, разработанной нами технологии генетической идентификации растений сахарной свёклы (Шалаева, 2024). Предлагаемый подход включает мультиплексную ПЦР по всем локусам (табл. 1) с последующим электрофоретическим анализом полученных фрагментов ДНК в одном капилляре генетического анализатора.
Таблица 1 – Характеристика микросателлитных локусов генома сахарной свёклы в составе мультиплекса
| № | Флуоресцентный краситель | Микросателлитный локус | Хромосомная локализация | Диапазон длин выявляемых аллелей, п.н. | Количество выявляемых аллелей |
|---|---|---|---|---|---|
| 1 | FAM | SB 09 | II | 128-137 | 4 |
| 2 | FAM | FDSB 1033 | IX | 175-199 | 8 |
| 3 | FAM | Unigene 26753 | I | 285-303 | 7 |
| 4 | R6G | SB15 | V | 136-166 | 7 |
| 5 | R6G | Unigene 27833 | I | 182-206 | 7 |
| 6 | R6G | Unigene 16898 | VIII | 276-291 | 6 |
| 7 | R6G | FDSB 1001 | IX | 310-348 | 6 |
| 8 | TAMRA | Unigene 17623B | V | 146-176 | 11 |
| 9 | TAMRA | Unigene 17923 | IV | 198-225 | 11 |
| 10 | ROX | SB04 | V | 175-193 | 7 |
В процессе размножения данных линий были получены маточные растения (корнеплоды-штеклинги) и семена с них. Для каждого корнеплода-штеклинга и проростка семян был получен индивидуальный цифровой ДНК-профиль. На рис.2 представлена электрофореграмма ДНК-профиля линии 41815, полученная в результате мультиплексного анализа по 10 микросателлитным локусам FDSB1001, FDSB1033, SB04, SB09, SB15, Unigene16898, Unigene17623B, Unigene17923, Unigene26753, Unigene27833. Программное обеспечение GeneMapper ID-X автоматически присваивает каждому аллелю цифровую характеристику в парах нуклеотидов (указана в рамке под каждым пиком) путем сопоставления длины анализируемых ПЦР-продуктов с интервалами Bin (отмечены серым цветом) аллельной лестницы.
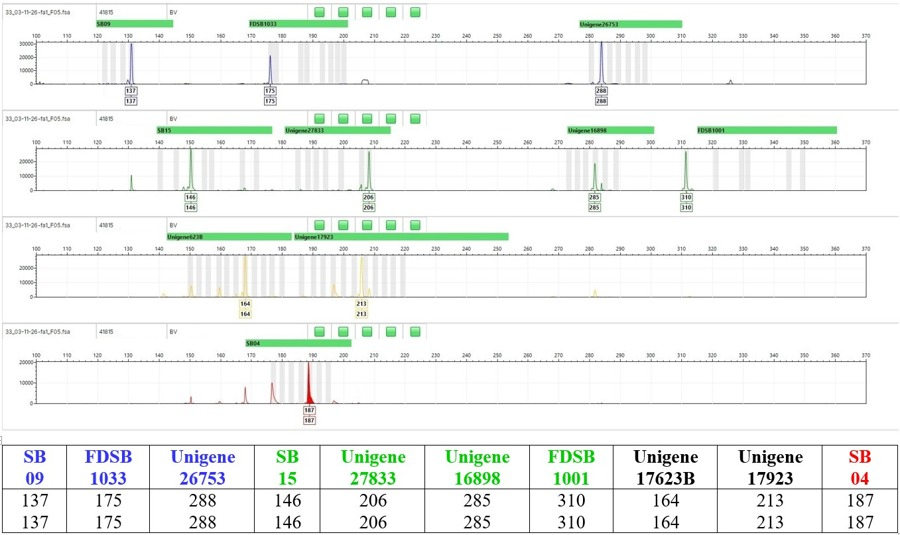
Рис. 2 – ДНК-профиль линии 41815 по 10 микросателлитным локусам FDSB1001, FDSB1033, SB04, SB09, SB15, Unigene16898, Unigene17623B, Unigene17923, Unigene26753, Unigene27833
На первом этапе настоящей работы были проанализированы маточные растения первого года жизни (корнеплоды - штеклинги) линий-компонентов гибридов сахарной свеклы. Результаты анализа цифровых ДНК-профилей исследуемых линий показали, что все линии-компоненты были однородны и имели уникальные генотипы. На следующий год с этих маточных растений были получены семена и выращены растения, для которых также были получены ДНК-профили. В таблице 2 приведены генотипы проростков семян каждой линии.
Таблица 2 – Цифровые генотипы полученных проростков семян линий сахарной свеклы
| Линия | № растения | Длина аллелей, п.н. | |||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|
| SB 09 | FDSB 1033 | Unigene 26753 | SB 15 | Unigene 27833 | Unigene 16898 | FDSB 1001 | Unigene 17623B | Unigene 17923 | SB 04 | ||
| 35481 | 1-5 | 134 134 | 195 195 | 288 288 | 146 146 | 206 206 | 285 285 | 330 330 | 164 164 | 222 222 | 187 187 |
| 41737 | 1-5 | 137 137 | 175 175 | 303 303 | 146 146 | 206 206 | 285 285 | 310 310 | 164 164 | 204 204 | 187 187 |
| 41815 | 1-5 | 137 137 | 175 175 | 288 288 | 146 146 | 206 206 | 285 285 | 310 310 | 164 164 | 213 213 | 187 187 |
| 41836 | 1-5 | 134 134 | 195 195 | 288 288 | 140 140 | 206 206 | 276 276 | 330 330 | 164 164 | 222 222 | 190 190 |
| 41895 | 1-5 | 137 137 | 195 195 | 288 288 | 140 140 | 206 206 | 276 276 | 318 318 | 170 170 | 207 207 | 187 187 |
| 41972 | 1-5 | 137 137 | 192 192 | 288 288 | 140 140 | 197 197 | 279 279 | 330 330 | 164 164 | 198 198 | 181 181 |
| 42660 | 1-5 | 134 134 | 192 192 | 288 288 | 140 140 | 206 206 | 276 276 | 344 344 | 164 164 | 222 222 | 190 190 |
| 42661 | 1-5 | 137 137 | 192 192 | 294 294 | 140 140 | 203 203 | 285 285 | 330 330 | 164 164 | 198 198 | 187 187 |
| 37131 | 1 | 137 137 | 195 195 | 288 288 | 140 140 | 206 206 | 276 276 | 318 318 | 164 170 | 204 207 | 187 187 |
| 2 | 131 137 | 192 192 | 288 288 | 140 140 | 206 206 | 276 276 | 318 318 | 170 170 | 204 207 | 187 187 | |
| 3 | 137 137 | 195 195 | 288 288 | 140 140 | 206 206 | 276 276 | 318 330 | 170 170 | 207 207 | 187 187 | |
| 4 | 137 137 | 195 195 | 288 288 | 140 140 | 206 206 | 276 276 | 318 330 | 164 170 | 207 207 | 187 187 | |
| 5 | 131 137 | 192 192 | 288 288 | 140 140 | 206 206 | 276 276 | 318 318 | 170 170 | 207 207 | 187 187 | |
| 38378 | 1 | 131 134 | 175 175 | 285 288 | 140 140 | 206 206 | 276 276 | 310 310 | 164 164 | 222 222 | 187 190 |
| 2 | 131 134 | 175 192 | 285 288 | 140 140 | 206 206 | 276 276 | 310 330 | 164 164 | 204 222 | 187 190 | |
| 3 | 131 131 | 175 192 | 285 285 | 140 140 | 206 206 | 276 276 | 310 330 | 164 164 | 198 222 | 190 190 | |
| 4 | 131 134 | 175 175 | 285 285 | 140 140 | 206 206 | 276 276 | 330 330 | 164 164 | 198 222 | 190 190 | |
| 5 | 131 134 | 175 175 | 285 303 | 140 140 | 206 206 | 276 276 | 310 310 | 164 164 | 222 222 | 190 190 | |
| 38384 | 1 | 131 137 | 195 195 | 288 288 | 140 140 | 206 206 | 276 276 | 318 318 | 170 170 | 207 207 | 187 187 |
| 2 | 137 137 | 192 192 | 288 288 | 140 140 | 206 206 | 276 276 | 318 318 | 164 170 | 207 207 | 187 187 | |
| 3 | 134 137 | 195 195 | 288 288 | 166 166 | 206 206 | 276 276 | 318 330 | 164 170 | 207 207 | 187 187 | |
| 4 | 137 137 | 195 195 | 288 288 | 140 140 | 206 206 | 276 276 | 318 318 | 170 170 | 207 207 | 187 187 | |
| 5 | 131 137 | 195 195 | 288 288 | 166 166 | 206 206 | 276 276 | 310 318 | 164 164 | 204 216 | 187 187 | |
Был проведен молекулярно-генетический анализ пяти проростков семян каждой линии. Семена 8 линий (35481, 41470, 41715, 41737, 41815, 41972, 42660, 42661) оказались однородными и совпадали по генотипу с исходными маточными растениями, в то время как семена 3 линий (37131, 38378, 38384) содержали примеси чужеродных генотипов. Данные неоднородные линии были исключены из дальнейшего процесса семеноводства сахарной свеклы. Таким образом, применение молекулярно-генетического анализа позволило отслеживать качество размножаемых линий-компонентов гибридов сахарной свеклы.
Заключение
Микросателлитный анализ растений сахарной свеклы может быть рекомендован в качестве дополнительного инструмента достоверного подтверждения генетической однородности и гомогенности размножаемых родительских линий в технологическом процессе семеноводства данной культуры.
Финансирование
Исследование выполнено при поддержке Министерства науки и высшего образования Российской Федерации (государственное задание № FGUM-2025-0002).
Список литературы / References
- Балков И.Я., Каракотов С.Д., Логвинов А.В., Логвинов В.А., Мищенко В.Н. Эволюция сахарной свёклы: от огородных форм до современных рентабельных гибридов. Щелково, АО «Щёлково Агрохим», 2017. –384 c.
- Логвинов, А. В., Мищенко, В.Н., Логвинов, В.А Новые гибриды сахарной свеклы // Труды Кубанского государственного аграрного университета. 2020. №. 82. С. 80-89.
- Шалаева Т.В., Анискина Ю.В., Колобова О.С., Велишаева Н.С., Логвинов А.В., Мищенко В.Н., Шилов И.А Исследование микросателлитных локусов генома сахарной свеклы (Beta vulgaris L. ssp. vulgaris) для создания технологии генетического анализа линий и гибридов // Сельскохозяйственная биология. 2023. Т. 58. № 3. С. 483-493. https://doi.org/10.15389/agrobiology.2023.3.483rus.
- Шалаева Т.В., Логвинов А.В., Мищенко Н.В., Шилов И.А. Применение генетического анализа в селекции сахарной свёклы // I Международная научно-практическая конференция «Актуальные проблемы науки и практики в исследованиях молодых ученых», г. Новосибирск, 21-22 мая 2024 г.: сборник статей по результатам конференции. Сибирский федеральный научный центр агробиотехнологий РАН, Новосибирский государственный аграрный университет, Новосибирск, 2024. С. 476-479.
- Шалаева Т.В., Анискина Ю.В., Колобова О.С., Велишаева Н.С., Мищенко В.Н., Логвинов А.В., Шилов И.А. Технология генетической идентификации линий и гибридов сахарной свеклы на основе мультиплексного микросателлитного анализа // Биотехнология. 2024. Т. 40. № 3. – С. 118-126. https://doi.org/10.56304/S023427582403013X.
- Doyle J.J., Doyle J.L. A rapid DNA isolation procedure for small quantities of fresh leaf tissue // Phytochem. Bull. 1987. №. 19. P. 11-15.
- Fugate K. K., Fajardo D., Schlautman B., Ferrareze J. P., Bolton M. D., Campbell L. G., Wiesman E., Zalapa J. Generation and characterization of a sugarbeet transcriptome and transcript-based SSR markers // The Plant Genome. 2014. Vol. 7. № 2. P. 1-13. https://doi.org/10.3835/plantgenome2013.11.0038.
- McGrath J. M., Trebbi D., Fenwick A., Panella L., Schulz B., Laurent V., Murray S. C. An Open-Source First-Generation Molecular Genetic Map from a Sugarbeet × Table Beet Cross and Its Extension to Physical Mapping // Crop Science. 2007. № 1. P. 27-44. https://doi.org/10.2135/cropsci2006-05-0339tpg.
- Richards C.M., Brownson M., Mitchell S.E., Kresovich S., Panella L. Polymorphic microsatellite markers for inferring diversity in wild and domesticated sugar beet (Beta vulgaris) // Molecular Ecology Notes. 2004. Vol. 4. № 5. P. 243-245. https://doi.org/10.1111/j.1471-8286.2004.00630.x
Статья поступила в редакцию 10 июня 2026 г.
Поступила после доработки 24 июня 2026 г.
Принята к печати 28 июня 2026 г.
Received 10, June, 2026
Revised 24, June, 2026
Accepted 28, June, 2026