

Введение
Анализ морфологии гениталий (в нашем случае эндофаллусов представителей отряда Coleoptera) часто используется в исследованиях в разрешении проблем в области таксономии, филогении и систематики насекомых. На сегодняшний день имеется множество работ специалистов, применяющих морфологический анализ эндофаллусов по различным семействам жуков. Хорошо известны работы по подробному анализу эндофаллусов семейства Curculionidae (Арзанов, 2003, 2005), семейства Cerambycidae (Касаткин, 2003, 2006), семейства Tenebrionidae (Медведев, 2001). По надсемейству стафилиноидных жуков (Staphylinoidea) известны работы по морфологии эндофаллусов семейства Staphylinidae (Хачиков, 2005, 2006, 2015, 2020, 2023; Khachikov, Shavrin, 2010). По морфологии эндофаллусов Silphidae впервые подробные исследования были представлены в работе Э. А. Хачикова и Д. С. Попова (2006). В ней описаны структуры внутренних мешков 10 видов подсемейства Nicrophorinae. По изучению эндофаллусов подсемейства Silphinae известна только статья Э. А. Хачикова по виду Phosphuga ruzickai (Хачиков, 2011), других специальных исследований прежде не проводилось.
Здесь мы приводим результаты собственного исследования по изучению морфологических особенностей строения эндофаллусов некоторых видов жуков семейства Silphidae, подсемейства Silphinae для возможного будущего решения вопросов систематики и филогении данного подсемейства.
Для понимания дальнейшего анализа, сначала необходимо привести описание общего строения внутреннего мешка Silphinae. Наружный генитальный аппарат самцов (Николаев, Козьминых, 2002; Пушкин, 2019) подсемейства Silphinae, состоит из тонкой мембранозной фаллобазы, (в котором находится апикальная часть эндофаллуса) и сильно склеротизованный эдеагус, включающий в себя пенисную трубку и латерально расположенные две парамеры. Сам эндофаллус является мембранозным продолжением пенисной трубки, находящегося внутри последней. При расправлении он представляет собой крупную симметричную мембранозную объемную полую структуру сложной формы, на которой расположены различные более мелкие морфологические производные самой мембранозной части эндофаллуса такие как выросты, выступы, камеры и т.д. Кроме того, иногда встречаются склеротизованные структуры мембраны эндофаллуса – титилаторы, иглы и другие структуры.
Объекты и методы
Терминология строения эндофаллуса отчасти взята из литературы (Khachikov, Shavrin, 2010; Хачиков, 2015), частично введена самим автором.
Методика изготовления препаратов эндофаллуса выборочно была взята из работ (Шиленков, 1996; Касаткин, 2003, 2006; Арзанов, 2003) и заключалась в выворачивании внутреннего мешка из эдеагуса экземпляра самца Silphinae, предварительно размоченного в кипятке. Сам процесс изготовления препаратов эндофаллуса состоял в выдувании внутреннего мешка под давлением воздуха с помощью инсулинового шприца и высушивании его потоком горячего воздуха с использованием фена. В ряде случаев, когда препарат эндофаллуса имел повреждения мембраны – в виде образования перфорации, он заполнялся зубной пастой для поддержания и сохранения его формы.
Для составления четкой картины строения эндофаллусов мы вводим для их структур специальные термины, многие из которых являются специфическими для эндофаллуса отдельных видов. Эндофаллус условно делится на три части – фалломера (phallomer), и соответственно выделяют проксимальный (proximal phallomer), медиальный (medial phallomer) и дистальный (distal phallomer) фалломеры (Khachikov, Shavrin, 2010; Хачиков, 2015). Поскольку сами эндофаллусы, на своих отдельных проекциях имеют различное строение, то здесь они рассматриваются с трех сторон (проекций) – латеральной, дорзальной и вентральной.
Для описания нами использованы следующие термины, заимствованные с изменениями из работы Э. А. Хачикова, Д. С. Попова (2006). Ниже представлены основные из них.
Участки (section) – сильно склеротизированные или покрытые микротрихиями пространства поверхности эндофаллуса.
Камеры (chamber) – возвышения поверхности эндофаллуса, ширина которых меньше собственной длины, но больше своего основания.
Выступы (swelling) – возвышения поверхности внутреннего мешка, ширина которых хотя бы в основании больше их длины.
Выросты (projection) – возвышения поверхности внутреннего мешка, длина или высота которых значительно, по крайней мере, более чем в два раза, превышает ширину (Хачиков, 2006).
Микротрихии (microtrichia) это – склеротизированные структуры, имеющие вид коротких волосков.
Для обозначения вооружения эндофаллуса, представленного склеритами различной формы, предлагается термин титиллатор (Шванвич, 1949). Наиболее часто на эндофаллусах имеются титиллаторы следующих форм:
Титиллаторы-ламины (titillator-lamina) – мелкие склериты разной формы;
Титиллаторы-щетки (titillator-brush) – склериты, состоящие из шипиков (Хачиков, 2006);
Масштаб линейки на рисунках равен 1 мм.
Все материалы хранятся в музее кафедры зоологии Академии биологии и медицины им. Д.И. Ивановского.
Краткие обозначения
tb – титиллатор-щетка (titillator-brush) (Khachikov, Shavrin, 2010);
tbm – титиллатор-щетка-муфта (titillator-brush-muff) (Хачиков, 2015);
ttbd – базально-дорзальный титиллатор (basal-dorsal titillator) (original);
tbv – базально-вентральный титиллатор (basal-ventral titillator) (Khachikov, Shavrin, 2010);
tlb – титиллатор-ламина (titillator-lamina) (Khachikov, Shavrin, 2010);
sa – апикальный выступ (apical swelling) (original);
spd – проксимальный дорзальный выступ (proximal dorsal swelling) (original);
spv – проксимальный вентральный выступ (proximal ventral swelling) (original);
sdv – дистальный вентральный выступ (distal ventral swelling) (Хачиков, 2015);
sbl – базально-латеральный выступ (basal-lateral swelling) (original);
sb – базальный выступ (basal swelling) (original);
sm – медиальный выступ (medial swelling) (original);
smd – медио-дорзальный выступ (medial-dorsal swelling) (original);
sbv – базально-вентральный выступ (basal-ventral swelling) (original);
sd – дорзальный выступ (dorsal swelling) (original);
sdp – выступ дистального фалломера (distal phallomer swelling) (original);
sbp – выступ базального фалломера (basal phallomer swelling) (original);
sml – медио-латеральный выступ (medial-dorsal swelling) (original);
sic – накамерный выступ (in-chamber swelling) (original);
paf – апикальный раздвоенный вырост (apical forked projection) (original);
pbl – базально-латеральный вырост (basal-lateral projection) (Хачиков, 2015);
ptv – тройной вентральный выступ (triplex-ventral projection) (original);
pic – накамерный вырост (in-chamber projection) (original);
pbd – базальный дорзальный вырост (basal-dorsal projection) (Khachikov, Shavrin, 2010);
phd – дистальный фалломер (distal phallomer) (Khachikov, Shavrin, 2010; Хачиков, 2015);
phm – медиальный фалломер (medial phallomer) (Khachikov, Shavrin, 2010; Хачиков, 2015);
php – проксимальный фалломер (proximal phallomer) (Khachikov, Shavrin, 2010; Хачиков, 2015);
ca – апикальная камера (apical chamber), (original);
cb – базальная камера (basal chamber), (Касаткин, 2006);
chal – апикальная латеральная камера (apica-lateral chamber) (original);
chbl – базально-латеральные камеры (basal-lateral chamber) (Хачиков, 2015);
msp – шиповидные микротрихии (microtrichia spinae) (original);
as – склеротизованное кольцо (scleritized anulus) (original);
fs – склеротизованная трубка (scleritized fistulam) (original);
acs – игольчатый участок (acus section) (original);
macs – тёмный игольчатый участок (acus section morulus) (original);
sals – сильно склеротизованый участок (altus sclerotized section) (original);
swks – слабо склеротизованый участок (weakly sclerotized section) (original);
sm – мембранозный участок (membranous section) (original);
sc – полый шов (satura curvus) (original);
scc – склеротизированный шов (sclerotized curvus) (original);
svl – вентрально-латеральный шов (satura ventral-lateral) (original);
ipm – проксимально-медиальный перехват (proximal-medial interceptio), (original).
Результаты
Подсемейство: Silphinae (Latreille, 1807)
Род Necrodes (Leach, 1815)
Necrodes littoralis (Linnaeus, 1758) (Рис. 1)
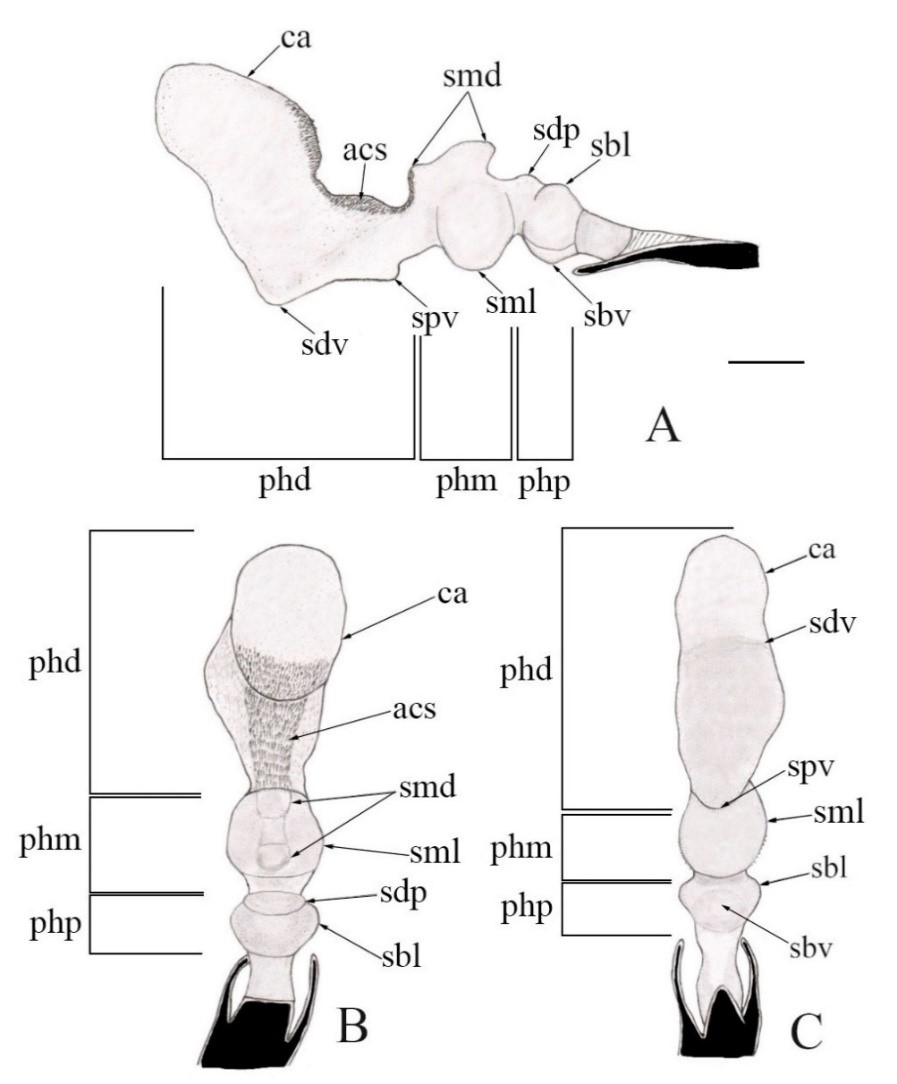
Рисунок 1. Эндофаллус Necrodes littoralis (A – латерально; B – дорзально; C – вентрально)
Материал: Россия, 1♂, Краснодарский край, Анапа, 3 км вост. пос. Б. Утриш, 24-30.08.2003, (Попов Д., Рудайков А., Хачиков Э. А.).
Эндофаллус длиной 3 мм, изогнут вентральном направлении.
Проксимальный фалломер в своей базальной части содержит небольшой парный sbl, с вентральной стороны которого находится sbv. Чуть дистальнее sbl находиться небольшой слабо выдающийся sdv.
Медиальный фалломер с вентральной стороны имеет крупный расширенный sml. С дорзальной стороны от него расположено двойной smd, больший конец которого изогнут в сторону проксимального фалломера, а меньший в противоположную сторону дистального фалломера. Он покрыт поясом acs, которой переходит на дорзальную часть дистального фалломера.
Дистальный фалломер изгибается в дорзо-вентральном направлении. С вентральной стороны имеет два выроста – pvs и dvs. Апикальная часть дистального фалломера вытянута и слегка изогнута в дорзальном направлении и оканчивается ca.
Род Oiceptoma (Leach, 1815)
Oiceptoma thoracicum (Linnaeus, 1758) (Рис. 2)
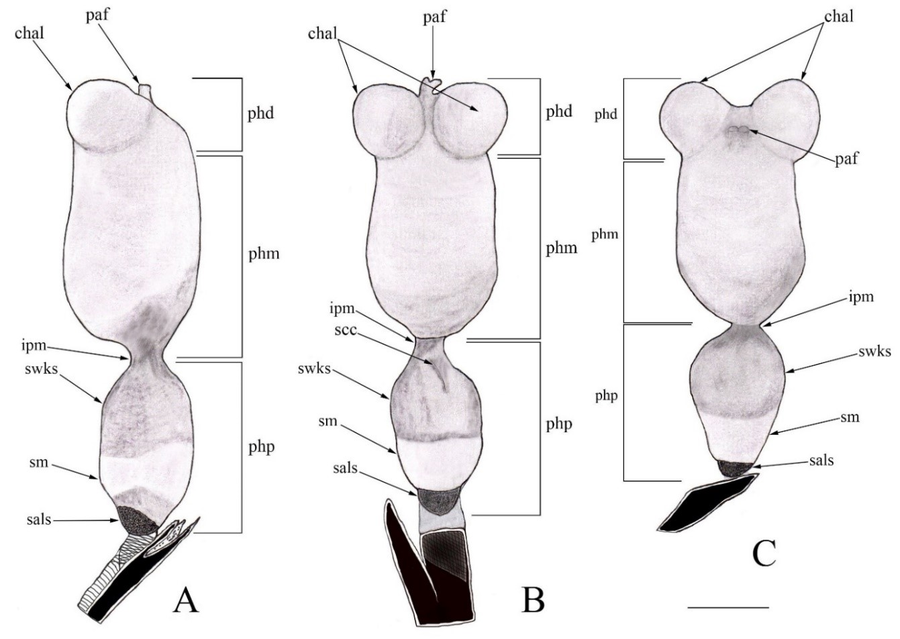
Рисунок 2. Эндофаллус Oiceptoma thoracicum (A – латерально; B – дорзально; C – вентрально)
Материал: 1♂, 12.05.2014
Эндофаллус длиной 7 мм., имеет прямую форму.
Проксимальный фалломер включает в своей основе sals, выше которого находится sm, и заканчивается обширным swks, несущем на дорзальной стороне маленький scc. Сам swks распространяется вплоть до ipm между проксимальным и медиальным фалломером, где заходит до начала последнего и распространяется до его середины.
Дистальный фалломер несет по бокам две крупные округлые chal, а также маленький paf между ними.
Род Thanatophilus (Leach, 1815)
Thanatophilus rugosus (Linnaeus, 1758) (Рис. 3)
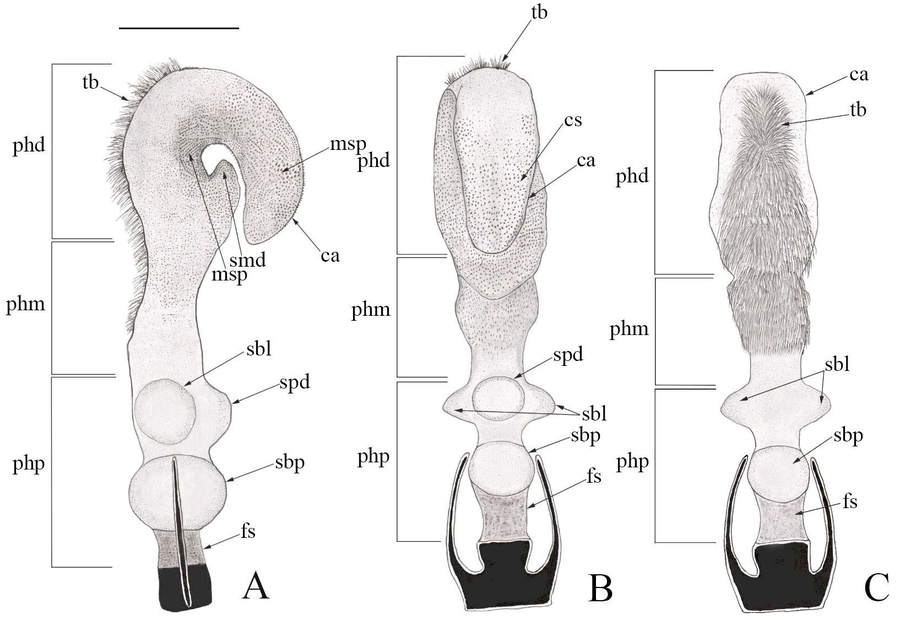
Рисунок 3. Эндофаллус Thanatophilus rugosus (A – латерально; B – дорзально; C – вентрально)
Материал: Россия, 1♂, Ростов-на Дону, 07.05.2012, (Хачиков Э. А.); Россия, 1♂, Дагестан, г. Шальбуздаг, 2833-3026, 2-11.05.2021, (Хачиков Э. А.).
Эндофаллус длиной 4 мм., изогнут в дорзальном направлении.
Латерально в дистальном фалломере изогнутая ca густо покрыта шиповидными микротрихиями (msp). По мере перехода от дистального фалломера в сторону медиального микротрихии приобретают свою типичную мелкую структуру. Ближе к медиальному фалломеру под основной изогнутой ca и между крупным smd находится поле густо покрытое короткими msp. Сам smd также покрыт ими, но в меньшей степени. По мере перехода к медиальному фалломеру, микротрихии также приобретают типичную мелкую структуру. Дистальнее на вентральной стороне от ca находится tb, продолжающийся до медиального фалломера.
Вентрально от апикального (не доходя до места перегиба) до медиального фалломера расположен продольный tb.
В проксимальном фалломере имеется несколько структур. В основании проксимального фалломера имеется fs, дистальнее которой находится sbp, видимое со всех сторон. Еще дистальнее находится три небольших выступа: один spd в дорзальной части, и два симметричных sbl.
Thanatophilus sinuatus (Fabricius, 1775) (Рис. 4)
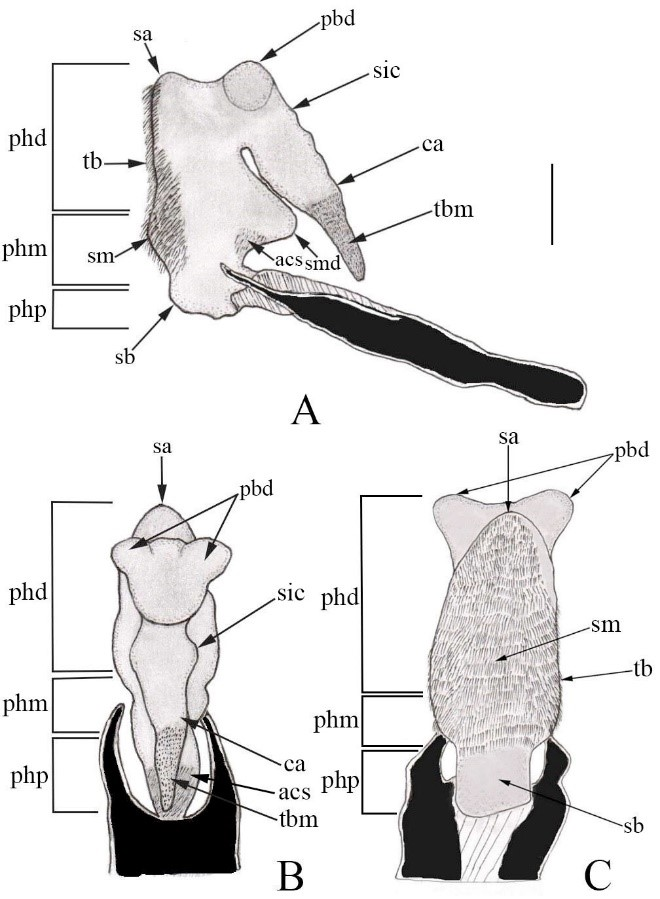
Рисунок 4. Эндофаллус Thanatophilus sinuatus (A – латерально; B – дорзально; C – вентрально)
Материал: Россия, 1♂, Теберда, 20.07.2012, (сборщик не указан).
Эндофаллус длиной 3 мм. Как и у Thanatophilus rugosus изогнут в дорзальном направлении.
Латерально по краю от загнутой апикальной камеры несет три выступа: sb в проксимальном фалломере, sm в медиальном фалломере и sa в дистальном фалломере. sm и sa покрыты продольным tb. Проксимальнее находится крупный smd имеющий небольшой acs.
Вентрально к дистальному фалломеру заметны два pbd относящегося к sa as, которые лучше видны с дорзальной стороны, где каудальнее находится небольшое sic, переходящее в вытянутую ca, конец которой покрыт мелким tbm.
Род Sipha (Linnaeus, 1758)
Silpha obscura (Linnaeus, 1758) (Рис. 5)
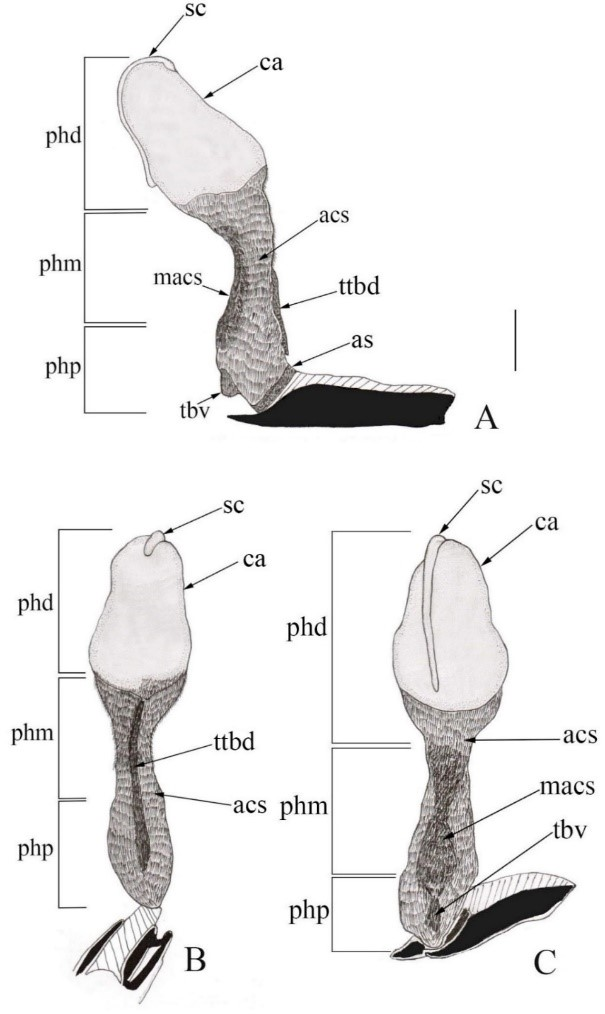
Рисунок 5. Эндофаллус Silpha obscura (A – латерально; B – дорзально; C – вентрально)
Материал: Россия, 1♂, Ростов-на-Дону, Полигон, (за Сев. кладб.), 02.05.1999, (Арзанов Ю.Г.).
Эндофаллус длиной 6 мм. Изогнут в вентральном направлении и заканчивается сужающейся овальной ca.
Латерально в проксимальном фалломере в базальной части имеется as, проксимальнее от него с вентральной стороны находится непарный tbv с бугристой поверхностью. Дистальнее находится продольный густой macs, заходящий на медиальный фалломер с небольшим сужением. Сам проксимальный, медиальный и частично дистальный фалломеры покрыты acs. С противоположной дорзальной стороны от as, протягивается тонкий вытянутый ttbd, протягивающийся через весь медиальный фалломер и почти достигающий ca.
Ca представляет собой апикально сужающийся овал с усеченной с боков формой и имеет ярко-выраженный sc, являющийся выростом последней и пролегающий от её верхушки с дорзальной стороны и проходящую вдоль всей ca по центру с вентральной стороны.
Silpha tristis (Illiger, 1798) (Рис. 6)
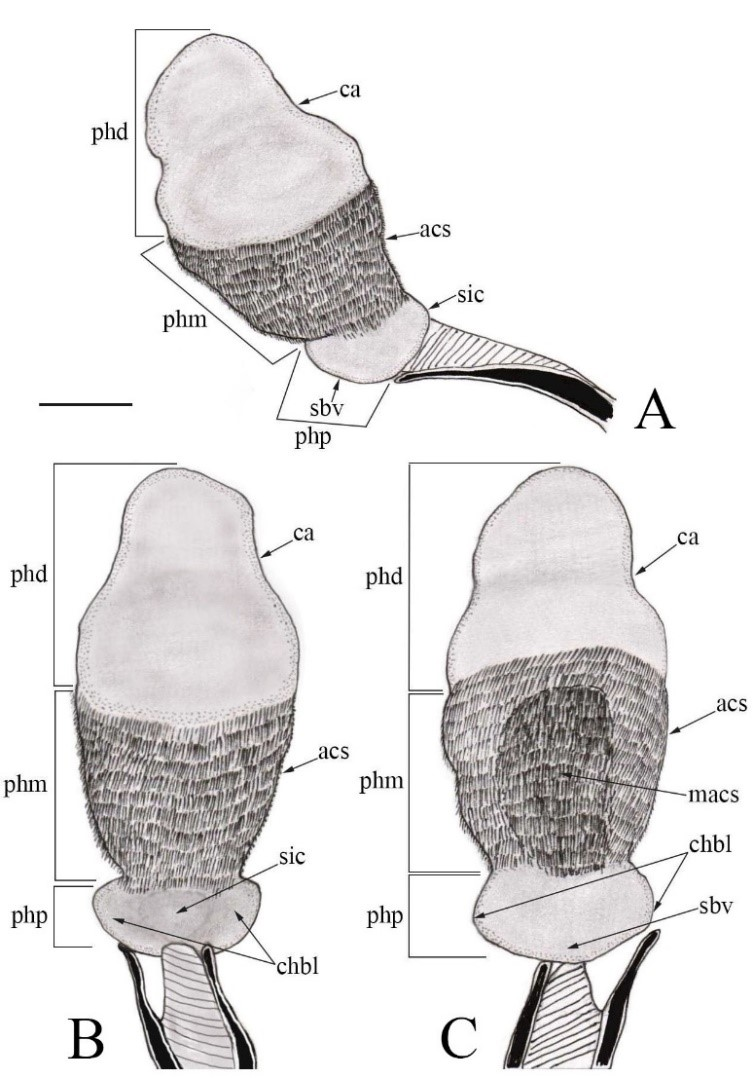
Рис. 6. – Эндофаллус Silpha tristis (A – латерально; B – дорзально; C – вентрально)
Материал: Россия, 1♂, Ростовская обл. балка р. Донской Чулек, низ, влажный луг, 17-14.06.2024, (Климович К.Г.).
Эндофаллус длиной 5 мм. Как и у всех рассмотренных представителей рода Silpha он изогнут, но в дорзальном направлении.
Латерально в проксимальном фалломере имеет расширенную chbl. С дорзальной стороны в центре chbl находится небольшой sic. С вентральной стороны chbl переходит в плавный sbv.
В медиальном фалломере с вентральной стороны покрыта продолговатым овальным macs, состоящим из более темноокрашенных густых игольчатых склеритов. Сам медиальный фалломер полностью покрыт acs, который также частично заходит на проксимальный и дистальный фалломеры.
В дистальном фалломере находится яйцевидная ca, усечённая с боков и изогнутая в дорзальном направлении.
Silpha carinata (Herbst, 1783) (Рис. 7)
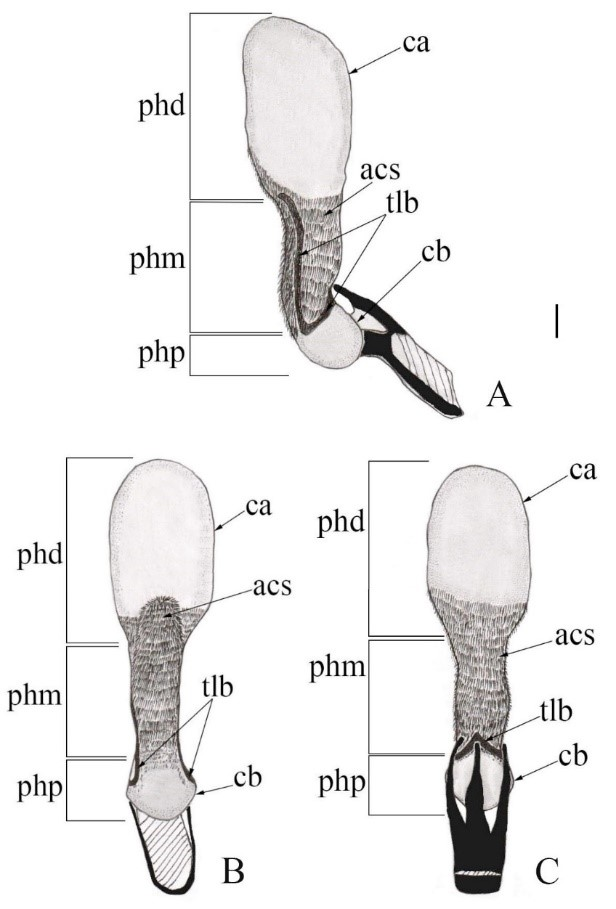
Рисунок 7. Эндофаллус Silpha carinata (A – латерально; B – дорзально; C – вентрально)
Материал: Россия, 1♂, Ростовская обл., Шахты, 5-7.07.2003, (Попов Д.С.).
Эндофаллус длиной 1 см. Как и у всех рассмотренных представителей рода Silpha изогнут в вентро-дорзальном направлении.
В проксимальном фалломере находится округлая cb. Дистальнее нее находится tlb, которая вентрально имеет Λ-образную форму и располагается латерально по краям, ближе к доразальной стороне, где простирается по всему медиальному фалломеру и изгибается по направлению с его изгибами.
В медиальном фалломере, полностью покрытом густыми acs с дорзальной стороны Ո-образно распространяющимся на дистальный фалломер, затрагивая ca, которая имеет простую овоидную форму.
Род Dendroxena (Motschulsky, 1858)
Dendroxena quadrimaculata (Scopoli, 1772) (Рис. 8)
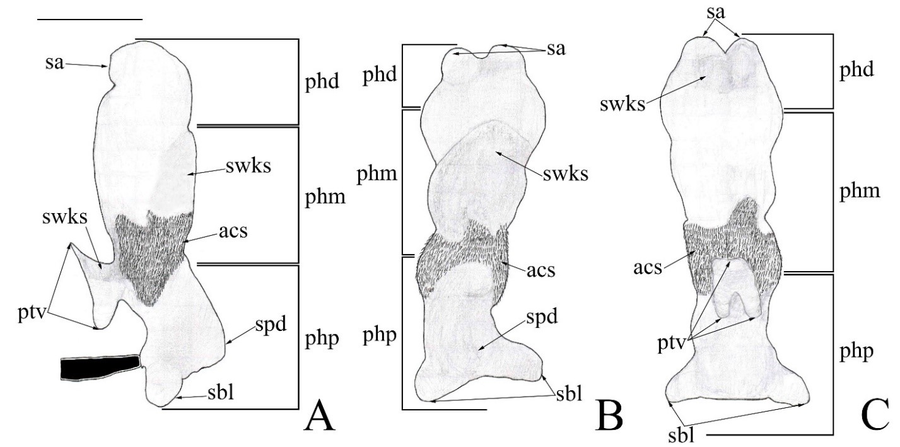
Рисунок 8. Эндофаллус Dendroxena quadrimaculata (A – латерально; B – дорзально; C – вентрально)
Материал: Россия, 1♂, Северная Осетия, Заманкул, Терский хр. 43’22”7”N; 44’24’6”E; 1,800 м, 27.04.2022 (Набоженко М.В.)
Эндофаллус длинной 4 мм. Слегка изогнут в вентро-дорзальном направлении.
В проксимальном фалломере находятся парные выше их с дорзальной стороны крупный spd.
С вентральной стороны на границе проксимального и медиального фалломеров имеется тройная структура – ptv, дорзальное покрытая swks. Границу между проксимальным и медиальным фалломером покрыта густым acs. С дорзальной стороны медиальный фалломер покрыт swks.
В дистальном фалломере эндофаллус расширяется и на его вершине локализованы две боковых sa.
Род Phosphuga (Leach, 1817)
Phosphuga atrata (Linnaeus, 1758) (Рис. 9)
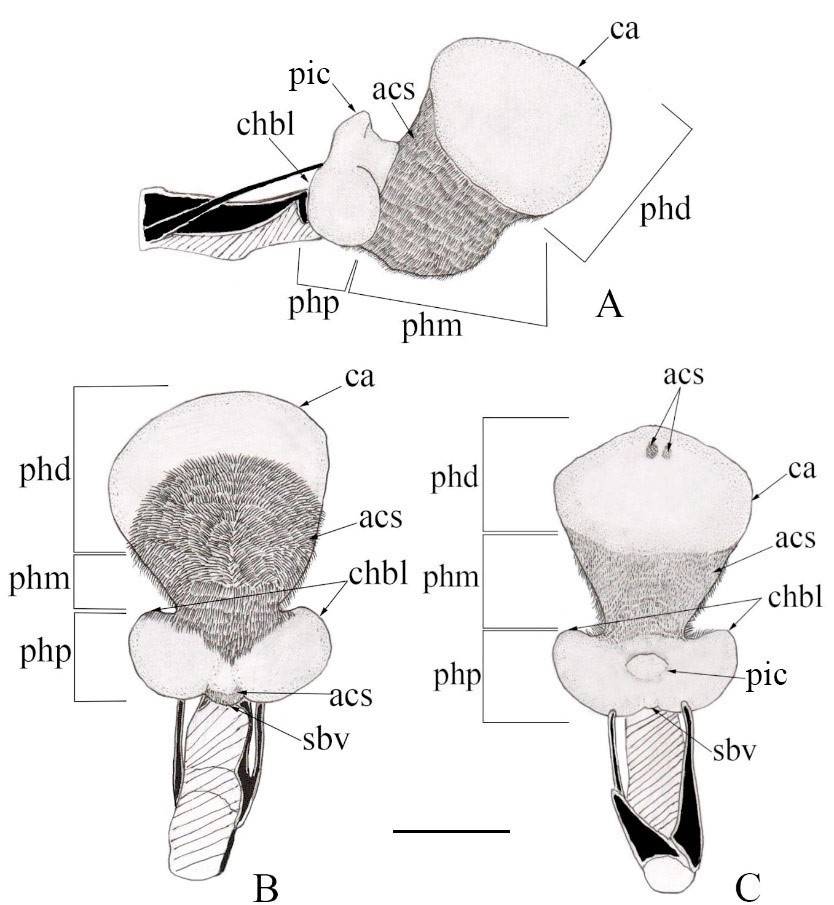
Рисунок 9. Эндофаллус Phosphuga atrata (A – латерально; B – дорзально; C – вентрально)
Материал: Грузия, 1♂, Мцхета-Мтианети, 4 км Ю-З от г. Тианети выс. = 1300 м, 30.04-01.07.2016, N42˚03’50,92”E44˚56’39,99”, (Хачиков Э.А).
Эндофаллус длиной 4 мм. Имеет округлую форму, изогнут в дорзальном направлении. От своего основания апикально расширяется.
Проксимальный фалломер включает две chbl, проксимальнее находится небольшой pic, изогнутый вентрально по направлению к ca.
Медиальный фалломер сплошь густо покрыт густыми acs, который более густо расположен с дорзальной стороны, где также имеется округлый sbv, который также заметен с вентральной стороны. Каудальнее его acs заходит на chbl проксимального фалломера, в базальной части которых также находится небольшой acs.
Ca крупная округлой расширенной формы имеет на апикальной части с дорзальной стороны два маленьких acs.
Род Aclypea (Reitter,1884)
Aclypea undata (Mueller, 1776) (Рис. 10)
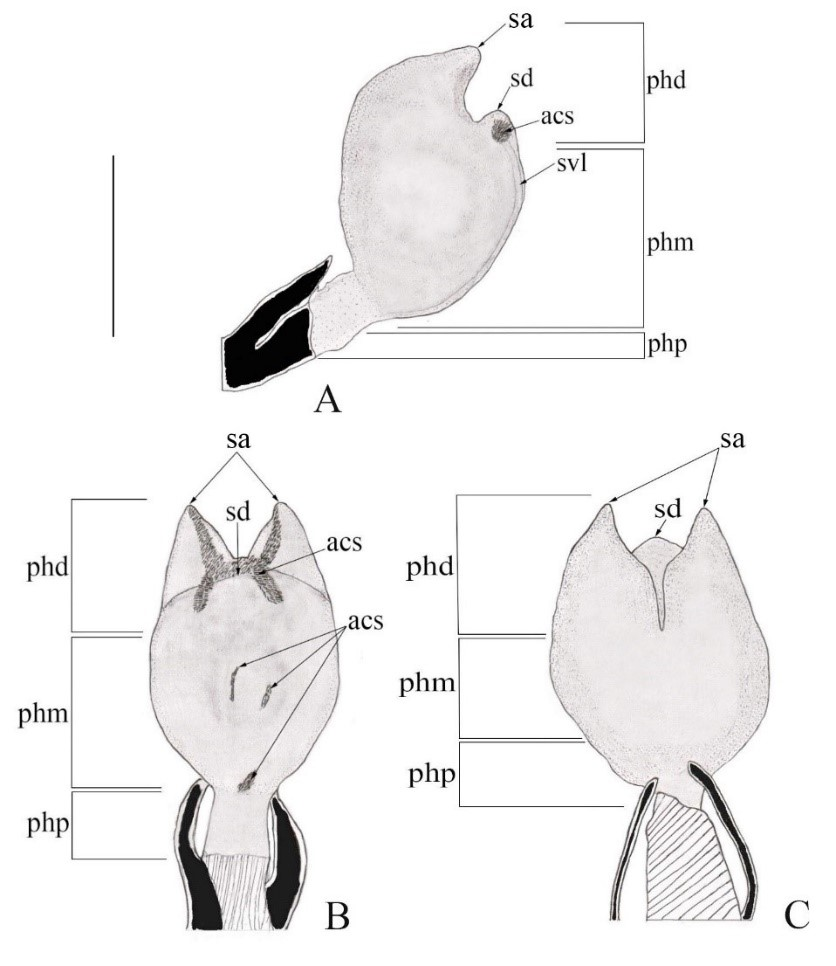
Рисунок 10. Эндофаллус Aclypea undata (A – латерально; B – дорзально; C – вентрально)
Материал: Россия, 1♂, Ю-В. Дагестан, ущ. Лалаам, 22.07.1997, (Хачиков Э.А.).
Эндофаллус длиной 2,5 мм. Имеет овальную форму. На дистальном фалломере имеет два парных крупных as, изогнутых в дорзальном направлении.
Проксимальный фалломер имеет вытянутую округлую форму, слабо склеротизованную с дорзальной стороны.
Медиальный фалломер округлый и расширяется к дистальному фалломеру, латерально с дорзальной стороны несет слабовыраженный svl, который тянется до acs принадлежащего крупному sd, изогнутой, формы с дорзальной стороны покрытый Ո-образным acs, который переходит на два вышеописанных парных крупных as. Проксимальнее вниз находятся два небольших продольных acs. Еще ниже на границе с проксимальным фалломером находится еще один небольшой acs.
Обсуждение
Проведя детальный морфологический анализ эндофаллусов Silphinae, с помощью компьютерной программы CLA, итогом которого стало построение дендрограммы сходства основных морфологических признаков эндофаллусов (рис. 11, 12), относительно рассмотренных выше родов Silphinae.
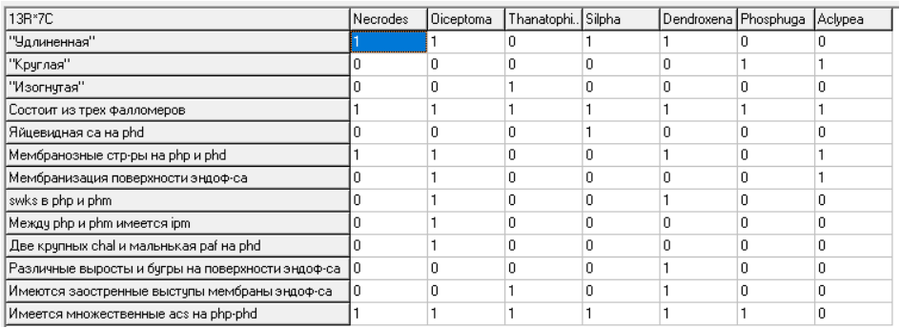
Рисунок 11. Матрица распределения морфологических признаков эндофаллусов родов Silphinae
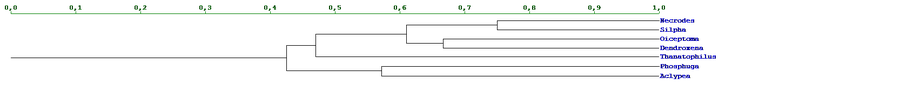
Рисунок 12. Дендрограмма сходства эндофаллусов изученных родов Silphinae
Исходя из дендрограммы (рис. 12), можно визуально выделить четыре кластера исходя из их общей формы эндофаллуса – названных «удлиненной», «раздвоенной», «изогнутой» и «округлой» формы.
К кластеру с эндофаллусами «удлиненной» формы относят соответственно роды: Necrodes и Silpha.
У представителя рода Necrodes эндофаллус представляет собой вытянутую структуру с множественными мембранозными структурами в проксимальном и медиальном фалломерах, с поясом acs на медиальном и дистальном фалломерах.
Представители рода Silpha имеют наиболее простую форму внутреннего мешка. У всех видов этого рода медиальный фалломер сплошь покрыт густым acs, а дистальный фалломер несет в себе овальную или яйцевидную ca. Проксимальный фалломер не всегда имеет в своем строении камеры.
К кластеру с эндофаллусами «раздвоенной» формы Oiceptoma и Dendroxena.
Примечательно, что в этот кластер попали таксоны, которые различны в своем общем морфологическом строении и биологии. Из чего мы можем сделать вывод о том, форма их эндофаллуса не говорит о их близкой родственности, а является результатом параллелизма.
У рода Oiceptoma эндофаллус единообразно раcширен в медиальном и дистальном фалломерах, а между проксимальном и медиальном фалломерах имеется ipm. Дистальный фалломер несет на конце последнего две крупных chal и небольшого paf между ними.
Таким образом эндофаллусы образуют ряд морфотипов – от строго вытянутой формой мешка, с расширяющейся частью в дистальном фалломере, до более широкой и округлой формой, с практически полной мембранизацией поверхности эндофаллуса и отсутcтвием на ней участков acs. Тем не менее на проксимальном фалломере имеются участки разной степени склеротизации – swks и sals соответственно. Однако по общей форме мы можем сблизить этот род с представителями, относящимися к кластеру «округлой» формы, а именно к роду Aclypea.
Несмотря на существенные различия в строении эндофаллусов Oiceptoma и Aclypea и принадлежность их к разным морфологическим кластерам, наблюдается вероятная гомология между некоторыми структурами внутреннего мешка этих родов. Такими как – парные шарообразные chal и небольшой paf между ними на дистальном фалломере Oiceptoma соответствуют небольшими парными as и небольшим sd между ними на дистальном фалломере у Aclypea.
У рода Dendroxena эндофаллус имеет вытянутую форму и в общих чертах похож на таковой у рода Silpha, за исключением небольшого вентро-дорзального изгиба и структур как парные sbl, spd и ptv, а также парных sa на вершине апикального фалломера. Первые – парные sbl и непарная spd гомологичны таковым у Thanatophilus rugosus. Вторые – ptv являются оригинальными структурами у этого рода.
В связи с вышеуказанными структурами эндофаллус рода Dendroxena, также демонстрирует промежуточную форму эндофаллуса от строго вытянутой к изогнутой форме мешка, так как имеет вентро-дорзальный изгиб и парные sbl и ptv в проксимальном и медиальном фалломере.
Отдельно выделен кластер с эндофаллусами «изогнутой» формы, включающим единственный род Thanatophilus. Его мы рассматриваем как наиболее морфологически сложноустроенный тип внутреннего мешка. Их внутренние мешки имеют дорзально загнутую форму, с различными выпуклыми структурами выдающимися над общей поверхностью мешка мембранозной камеры, а также включают в себя такие структуры как tb и acs, а также различные бугры, выступы и выросты.
К кластеру с эндофаллусами морфотипа «округлой» формы относятся два рода: Phosphuga и Aclypea.
Представитель рода Phosphuga имеет шарообразную форму внутреннего мешка на дистальном фалломере в районе ca, густо покрытый acs, медиальный фалломер, что сближает его с родом Silpha.
Также мы можем отнести в эту же группу вид Aclypea undata, который характеризуется округлым, почти шарообразным эндофаллусом достаточно простой формы, без явных видимых разграничений на фалломеры. Поверхность мешка лишена какой-либо склеротизации, но имеет участки acs на дорзальной части дистального и медиального фалломеров.
Примечательно, что в этот кластер попали таксоны, которые различны в своем общем морфологическом строении и биологии, из чего мы можем сделать вывод о том, что форма их эндофаллуса является результатом параллелизма.
Заключение
Проведенный матричный типологический анализ Silphinae иллюстрирует лишь внешнее сходство внутреннего мешка, не основываясь на каком-либо систематическом анализе и не проясняя родства рассмотренных выше таксонов. Здесь мы провели лишь описательную часть морфологии эндофаллусов Silphinae. Это лишь первый этап работы по морфологии эндофаллусов и систематике этого подсемейства.
Внутренние мешки родов имеют как сходства, так и различия в своем строении, а сама структура не подвержена прямому влиянию внешней среды, поскольку большую часть времени они находятся в эдеагусе, т.е. внутри тела, их строение предположительно может отражать генетическую специфику. Это позволяет использовать эту структуру для дальнейшего познания филогенеза группы.
Благодарности
Автор выражает глубокую признательность Хачикову Э.А. (Ростов-на-Дону, Россия) за ценные советы по содержанию данной работы и предоставленный материал.
Список литературы
- Арзанов, Ю. Г. Использование признаков внутреннего мешка эдеагуса в систематике долгоносикообразных жуков (Coleoptera, Curculionoidea) / Ю. Г. Арзанов // Энтомологическое обозрение. – 2003. – Т. 82, № 3. – С. 701-719.
- Арзанов, Ю. Г. К познанию систематики рода Conorhynchus sensu lato (Coleoptera: Curculionidae: Lixinae) / Ю. Г. Арзанов // Кавказский энтомологический бюллетень. – 2005. – Т. 1, № 1. – С. 57-64.
- Касаткин, Д. Г. Внутренний мешок эдеагуса жуков-дровосеков (Coleoptera: Cerambycidae): морфология, номенклатура структур, таксономическое значение / Д. Г. Касаткин // Кавказский энтомологический бюллетень. – 2006. – Т. 2, № 1. – С. 83-104.
- Касаткин, Д.Г. Эндофаллус жуков-дровосеков (Coleoptera, Cerambycidae) и его значение в решении таксономических проблем. Автореферат диссертации ... к.б.н. Москва. – 2003. – 19 с.
- Медведев, Г. С. Эволюция и система жуков-чернотелок трибы Blaptini (Coleoptera, Tenebrionidae) / Г. С. Медведев // Чтения памяти Н.А. Холодковского. – 2001. – № 53. – С. 4-331.
- Николаев, Г.В., Козьминых, В.О. Жуки-мертвоеды (Coleoptera: Agyrtidae, Silphidae) Казахстана, России и ряда сопредельных стран: Определитель. – Алматы: Казак университетi, 2002. – 159 с.
- Пушкин, С.В. Жуки-мертвоеды (Coleoptera, Silphidae) России: атлас-определитель / под ред. С.В. Пушкина. – 2-е изд. (монография) стер. – Москва; Берлин: Директ-Медиа. – 2019. – 169 с.
- Хачиков, Э. А. Внутреннее строение гениталий некоторых видов родов Ocypus Leach, 1819 и Tasgius Stephens, 1829 (Coleoptera: Staphylinidae) с описанием новых таксонов из рода Ocypus / Э. А. Хачиков // Кавказский энтомологический бюллетень. – 2005. – Т. 1, № 1. – С. 19-32.
- Хачиков, Э. А. К познанию комплекса видов, близких к Ocypus nitens (Schrank, 1781) (Coleoptera: Staphylinidae: Staphylininae) / Э. А. Хачиков // Кавказский энтомологический бюллетень. – 2020. – Т. 16, № 1. – С. 153-169. – DOI 10.23885/181433262020161-153169.
- Хачиков, Э. А. Морфология гениталий жуков-стафилинид подтрибы Staphylinina (Coleoptera: Staphylinidae: Staphylininae) и ее значение для системы этого таксона / Э. А. Хачиков // Кавказский энтомологический бюллетень. – 2015. – Т. 11, № 2. – С. 287-295.
- Хачиков, Э. А. Новые данные по морфологии и таксономии некоторых видов рода Nicrophorus Fabricius, 1775 (Coleoptera: Silphidae) / Э. А. Хачиков, Д. С. Попов // Кавказский энтомологический бюллетень. – 2006. – Т. 2, № 1. – С. 27-40.
- Хачиков, Э. А. Эпигенез комплекса родов «Platydracus» подтрибы Staphylinina Latreille, 1802 (Coleoptera: Staphylinidae, Staphylininae): монография / Э. А. Хачиков; Южный федеральный университет. – Ростов-на-Дону; Таганрог: Из-тво Южного федерального университета, 2023. 142 с. DOI 10.18522/801316670
- Шванвич, Б.Н. Курс общей энтомологии // Введение в изучение строения и функций тела насекомых: [Учебник для гос. университетов]. – М. – Л.: Изд-во Советская наука, 1949. – 900 с.
- Шиленков, В.Г. Жужелицы рода Carabus L. (Coleoptera, Carabidae) Южной Сибири. Иркутск: Изд-во Иркутск. ун-та. – 1996. – 75 с.
- Khachikov E. А. Genital structures of some East Palaearctic species of the subtribe Staphylinina Latreille, 1802 (Coleoptera, Staphylinidae) / E. А. Khachikov, A.V. Shavrin // Euroasian entomological journal. – 2010. – Vol. 9, № 4. – P. 631-640.
References
- Arzanov, Yu.G. 2003. The use of characters of the internal sac of the aedeagus in the systematics of weevils (Coleoptera, Curculionoidea). Entomological Review, Vol. 82(3): pp. 701–719. (In Russian).
- Arzanov, Yu.G. 2005. To the knowledge of the systematics of the genus Conorhynchus sensu lato (Coleoptera: Curculionidae: Lixinae). Caucasian Entomological Bulletin, Vol. 1(1): pp. 57–64. (In Russian).
- Kasatkin, D.G. 2006. The internal sac of the aedeagus in longhorn beetles (Coleoptera: Cerambycidae): morphology, nomenclature of structures, and taxonomic significance. Caucasian Entomological Bulletin, Vol. 2(1): pp. 83–104. (In Russian).
- Kasatkin, D.G. 2003. Endophallus of longhorn beetles (Coleoptera, Cerambycidae) and its significance in solving taxonomic problems. Abstract of Ph.D. thesis. Moscow. 19 pp. (In Russian).
- Medvedev, G.S. 2001. Evolution and system of darkling beetles of the tribe Blaptini (Coleoptera, Tenebrionidae). Lectures in memory of N.A. Kholodkovsky, No. 53: pp. 4–331. (In Russian).
- Nikolaev, G.V., and Kozminykh, V.O. 2002. Carrion beetles (Coleoptera: Agyrtidae, Silphidae) of Kazakhstan, Russia and adjacent countries: A key. Almaty: Kazakh University Press. 159 pp. (In Russian).
- Pushkin, S.V. 2019. Carrion beetles (Coleoptera, Silphidae) of Russia: atlas-identifier. 2nd ed. (monograph), ster. Moscow – Berlin: Direkt-Media. 169 pp. (In Russian).
- Khachikov, E.A. 2005. Internal structure of genitalia in some species of the genera Ocypus Leach, 1819 and Tasgius Stephens, 1829 (Coleoptera: Staphylinidae), with descriptions of new taxa from the genus Ocypus. Caucasian Entomological Bulletin, Vol. 1(1): pp. 19–32. (In Russian).
- Khachikov, E.A. 2020. To the knowledge of the species complex allied to Ocypus nitens (Schrank, 1781) (Coleoptera: Staphylinidae: Staphylininae). Caucasian Entomological Bulletin, Vol. 16(1): pp. 153–169. DOI: 10.23885/181433262020161-153169. (In Russian).
- Khachikov, E.A. 2015. Morphology of genitalia of rove beetles of the subtribe Staphylinina (Coleoptera: Staphylinidae: Staphylininae) and its significance for the system of this taxon. Caucasian Entomological Bulletin, Vol. 11(2): pp. 287–295. (In Russian).
- Khachikov, E.A., and Popov, D.S. 2006. New data on the morphology and taxonomy of some species of the genus Nicrophorus Fabricius, 1775 (Coleoptera: Silphidae). Caucasian Entomological Bulletin, Vol. 2(1): pp. 27–40. (In Russian).
- Khachikov, E.A. 2023. Epigenesis of the genus-complex «Platydracus» of the subtribe Staphylinina Latreille, 1802 (Coleoptera: Staphylinidae, Staphylininae): a monograph. Southern Federal University. Rostov-on-Don – Taganrog: Southern Federal University Press. 142 pp. DOI: 10.18522/801316670. (In Russian).
- Shvanvich, B.N. 1949. Course of general entomology: Introduction to the study of insect structure and function. Moscow – Leningrad: Sovetskaya Nauka Press. 900 pp. (In Russian).
- Shilenkov, V.G. 1996. Ground beetles of the genus Carabus L. (Coleoptera, Carabidae) of Southern Siberia. Irkutsk: Irkutsk University Press. 75 pp. (In Russian).
- Khachikov, E.A., and Shavrin, A.V. 2010. Genital structures of some East Palaearctic species of the subtribe Staphylinina Latreille, 1802 (Coleoptera, Staphylinidae). Euroasian Entomological Journal, Vol. 9(4): pp. 631–640.
Статья поступила в редакцию 10 июня 2026 г.
Поступила после доработки 24 июня 2026 г.
Принята к печати 28 июня 2026 г.
Received 10, June, 2026
Revised 24, June, 2026
Accepted 28, June, 2026