

Введение
Синдром поликистозных яичников (СПКЯ) относится к числу наиболее часто встречающихся эндокринных заболеваний, существенно затрагивающих женщин репродуктивного возраста по всему миру. Согласно данным Всемирной организации здравоохранения, данный синдром поражает примерно 6–13 % женщин репродуктивного возраста, при этом до 70 % случаев во всем мире остаются недиагностированными.
Кроме того, СПКЯ не ограничивается лишь репродуктивными проблемами, такими как нарушения менструального цикла или бесплодие, но также, как подчеркивают многочисленные исследования, значительно повышает риск развития ряда гормональных и метаболических расстройств, включая ожирение, гиперинсулинемию, инсулинорезистентность, сахарный диабет 2-го типа, дислипидемию, аномальный стероидогенез, а также сердечно-сосудистые заболевания и бесплодие (Бурлакова и др., 2022; Овчаренко и др., 2020; Tu et al., 2019). Несмотря на достигнутый в последние годы прогресс в понимании общих механизмов патогенеза СПКЯ, фундаментальные процессы, лежащие в основе его развития и прогрессирования, по-прежнему остаются недостаточно изученными и требуют дальнейшего анализа. Более того, лечение СПКЯ в основном носит симптоматический характер и мало ориентировано на его патофизиологию (Pratama et al., 2024).
Генетические исследования указывают на значительный вклад наследственных факторов в развитие СПКЯ. В голландском исследовании близнецов было показано, что сходство по признакам СПКЯ выше у монозиготных близнецов, чем у дизиготных, а наследуемость синдрома оценена примерно в 79 % (Vink et al., 2006). При этом СПКЯ является многофакторным заболеванием, развитие которого определяется взаимодействием генетической предрасположенности и факторов внешней среды. Описаны ассоциации СПКЯ с генами, участвующими в регуляции стероидогенеза, инсулинового сигнала, фолликулогенеза и овуляции, включая THADA, DENND1A, INSR, FSHR и LHCGR (Найдукова и др., 2016). Однако точные механизмы влияния этих генетических факторов на возникновение и развитие синдрома остаются недостаточно изученными.
Особое внимание в этой области заслуживают кумулюсные клетки, представляющие собой специализированные соматические клетки, плотно окружающие ооцит и формирующие кумулюс-ооцитарный комплекс (КОК). Данные клетки формируют стенку фолликула, участвуют в стероидогенезе и экспрессируют рецепторы фолликулостимулирующего и лютеинизирующего гормонов, нарушения которых приводят к торможению фолликулярного роста при СПКЯ. Также они выполняют множество критически важных функций, в частности обеспечивают ооцит необходимыми питательными веществами, осуществляют синтез гиалуроновой кислоты и поддерживают ключевые межклеточные взаимодействия (Сафронова и др., 2015; Turathum, Gao, Chian, 2021). Однако при СПКЯ наблюдаются изменения в их функциональной активности и экспрессии генов, что приводит к нарушению процессов, связанных с овуляцией.
В последние годы ученые активно изучают роль длинных некодирующих РНК (lncRNA) в регуляции клеточных процессов яичников. Накоплено достаточно данных о значимой роли lncRNA и других генов в патологиях женской репродуктивной системы, однако их специфическая экспрессия и функциональная значимость именно при СПКЯ остаются недостаточно исследованными (Peng et al., 2025; Kim, et al., 2021; Владимирова и др., 2014) Недавние исследования выявили большое количество lncRNA с измененными уровнями экспрессии в плазме, сыворотке, фолликулярной жидкости и гранулёзных клетках (ГК) пациентов с СПКЯ. Дифференциально экспрессированные lncRNA в ГК могут вмешиваться в стероидогенез, митохондриальный метаболизм, сигнальные пути и овуляцию, что может способствовать бесплодию (Ali, 2023).
Инсулинорезистентность (ИР) является важным пусковым механизмом в патогенезе СПКЯ, приводящим впоследствии к гиперинсулинемии за счет гипертрофии клеток поджелудочной железы, что становится причиной сахарного диабета второго типа. Многочисленные исследования, посвященные изучению влияния инсулина на уровень андрогенов, доказали наличие в яичниках человека рецепторов чувствительных к инсулину, что говорит об участии инсулина в регуляции их функции (Алиева, 2017; Cara, 2021; Jin et al., 2023; Lan, et al., 2025; Zhang, 2025).
Исследования показали, что инсулин может прямо стимулировать продукцию андрогенов и усиливать биосинтез андрогенов в тека-клетках яичников, как и инсулиноподобный фактор роста-1 (Diamanti-Kandarakis E. et al. 2009). Если в рецепторе инсулина имеется дефект, его действие реализуется именно через рецепторы ИФР-1. Инсулин и ИФР-1 способствуют усилению синтеза андрогенов как в тека-клетках, так и в строме, а также стимулируют выброс ЛГ. Вследствие снижения уровня эстрадиола и гиперинсулинемии уменьшается синтез ГСПГ (глобулин, связывающий половые гормоны), что приводит к увеличению концентрации свободного биологически активного тестостерона
В отличие от тека-клеток гранулёзные клетки не только синтезируют рецепторы к инсулину, но и вырабатывают эстрадиол для поддержания фолликулогенеза (Phy J. L. et al., 2004). Гиперинсулинемия при СПКЯ может нарушать стероидогенную функцию кумулюса, снижать продукцию эстрадиола и изменять чувствительность к гонадотропинам, что усугубляет овуляторную дисфункцию (Nestler, 2020). В связи с этим, моделирование гипергликемии и гиперинсулинемии на клеточной линии гранулёзных клеток человека KGN позволяет оценить транскрипционный ответ клеток на метаболические нарушения, характерные для СПКЯ, а также выявить потенциальные молекулярные мишени для терапевтического воздействия.
Целью данного исследования является комплексный анализ экспрессии SRA1 в кумулюсных клетках при синдроме поликистозных яичников, а также изучение экспрессии изоформ днРНК SRA1 в клеточной линии KGN в условиях метаболической модели гиперинсулинемии и гипергликемии с целью выявления и оценки возможной роли этих молекул в патогенезе СПКЯ.
Материалы и методы
1. Материалы исследования
1.1 Первичные кумулюсные клетки
Кумулюсные клетки для проведения исследования были получены от пациенток с СПКЯ (n=6) и контрольной группы (n=5). Все женщины проходили программу экстракорпорального оплодотворения (ЭКО). Возраст пациенток составил от 26 до 36 лет. Для стимуляции работы яичников применяли короткий протокол с антагонистами гонадотропин-рилизинг гормона (ГнРГ) — препаратами Цетротид или Оргалутран, которые временно подавляют выброс собственных гормонов гипофиза и позволяют лучше контролировать процесс стимуляции. Стимуляцию роста фолликулов проводили с помощью рекомбинантного фолликулостимулирующего гормона человека (рчФСГ) и человеческого менопаузального гонадотропина (чМГ) в индивидуально подобранных дозах. Индукцию овуляции проводили с помощью хорионического гонадотропина (рХГЧ) для запуска финального созревания ооцитов на 9-12-й день после начала гормональной стимуляции яичников. У пациенток с СПКЯ с целью снижения риска развития синдрома гиперстимуляции яичников вместо рХГЧ применяли аналог ГнРГ — препарат Декапептил. Аспирацию яйцеклеток проводили трансвагинальным ультразвуковым методом через 36 часов после инъекции рХГЧ или аналога ГнРГ. В исследование включали пациенток с бесплодием без операций на яичниках, других хронических или эндокринных заболеваний, с ИМТ ≤30 кг/м².
После пункции ооцитов эмбриологи отбирали КОК для последующих этапов ЭКО. Ооциты готовили к оплодотворению методом ИКСИ с помощью стандартной процедуры денудации – механического и ферментативного удаления лучистой короны и клеток кумулюса, окружающих ооцит. Кумулюсные клетки немедленно помещали в среду IntactRNA (Евроген, Россия), замораживали в соответствии с инструкцией и хранили при -20 ℃ до выделения РНК.
1.2 Клеточная линия KGN
Для проведения исследования использовали клеточную линию KGN, представляющую собой бессмертную линию гранулёзных клеток, полученных из опухоли яичника человека и обладающих способностью синтезировать стероидные гормоны. Клетки культивировали в питательной среде, состоящей из смеси DMEM/F-12 (Gibco, cat. № 11320-033), содержащей 315.1 мг/дл (17.5 мМ) глюкозы, с добавлением 10 % фетальной бычьей сыворотки (FBS, Gibco) и 1% раствора пенициллина/стрептомицина (PS, Gibco). Клетки поддерживали в стандартных условиях культивирования при 37 °C и 5 % CO₂.
Пассажирование проводили по стандартному протоколу. После удаления культуральной среды клетки промывали 2 мл фосфатно-солевого буфера PBS, затем вносили 1 мл 0.25 % раствора трипсина с ЭДТА (Gibco) и инкубировали при 37 °C до полной диссоциации и округления клеток. Процесс контролировали под инвертированным микроскопом. Для инактивации трипсина добавляли 1 мл полной питательной среды, ресуспендировали осадок, центрифугировали при 800 об/мин в течение 3 минут. Супернатант удаляли, клеточный осадок ресуспендировали в свежей полной культуральной среде, несколько раз перемешивали пипетированием и переносили в новый культуральный флакон.
2. Создание метаболической модели клеточной линии KGN c добавлением глюкозы и инсулина
В работе была использована клеточная линия гранулезных клеток человека KGN для оценки влияния глюкозного и инсулинового сигналов на экспрессию генов днРНК двух изоформ гена активатор РНК стероидных рецепторов SRA1: SRA1_g1 и SRA1_m1 ассоциированной с синдромом поликистозных яичников.
Метаболическое воздействие на клетки осуществляли путём добавления в питательную среду глюкозы и инсулина в шестнадцати концентрациях, отражающих диапазон от физиологических до патологических значений: глюкоза в концентрациях 80, 100, 130 и 160 мг/дл, инсулин в концентрациях 7, 15, 25 и 35 мкЕд/мл, а также сочетание глюкозы и инсулина в соответствующих комбинациях согласно экспериментальной схеме (таблица 1). Продолжительность инкубации составляла 24 и 48 часов. После удаление культуральной среды, нейтрализации трипсином и осаждения клетки переносили в пробирку типа эппендорф с реагентом Trizol с последующим хранением образцов при температуре -80 °C до этапа экстракции РНК.
Таблица 1 – Варианты условий метаболической модели клеточной линии KGN с добавлением в среду инсулина и глюкозы
| Вариант C1 | G1 | I1 | I1+ G1 |
|---|---|---|---|
| Контроль | Глюкоза 80 mg/dL | Инсулин 7 μU/mL | Глюкоза 80 mg/dL+ Инсулин 7μU/mL |
| Вариант C2 | G2 | I2 | I2+ G2 |
| Контроль | Глюкоза 100 mg/dL | Инсулин 15 μU/mL | Глюкоза 100 mg/dL + Инсулин 15 μU/mL |
| Вариант C3 | G3 | I3 | I3+ G3 |
| Контроль | Глюкоза 130 mg/dL | Инсулин 25 μU/mL | Глюкоза 130 mg/dL+ Инсулин 25 μU/mL |
| Вариант C4 | G4 | I4 | I4+ G4 |
| Контроль | Глюкоза 160 mg/dL | Инсулин 35 μU/mL | Глюкоза 160 mg/dL+ Инсулин 35 μU/mL |
3. Выделение нуклеиновых кислот и проведение ОТ-ПЦР
3.1 Выделение тотальной РНК из кумулюсных клеток
Выделение РНК из образцов клеток кумулюса проводилось методом выделения на магнитных частицах при помощи набора NAmagp100 (Биолабмикс, Россия) в соответствии с инструкцией производителя.
Выделенные РНК подвергали дополнительной обработке с использованием ДНКазы Е- 059 (Синтол, Россия), после чего осуществляли её тщательное очищение на спин-колонках с помощью специализированного набора CleanRNA Standard BC033 (Евроген, Россия).
Реакцию обратной транскрипции выполняли, применяя набор MMLV RT kit SK021 (Евроген, Россия), в общем объёме 20 мкл строго в соответствии с рекомендациями и инструкцией производителя. В качестве праймеров использовали олигогексапраймеры (Random6). Реакционную смесь затем инкубировали при температуре 37 ℃ в течение 60 минут, после чего при 70 ℃ в течении 10 минут. Полученную кДНК перед последующим применением в полимеразной цепной реакции (ПЦР) разводили водой, свободной от РНКаз, в пропорции 1:4.
3.2 Выделение тотальной РНК из клеток KGN
Выделение РНК из образцов клеточной линии KGN проводили с использованием реагента Trizol согласно протоколу производителя. Реакцию обратной транскрипции произвели, при помощи набор PrimeScript RT Master Mix. в общем объёме 20 мкл. В качестве праймеров использовали олигогексапраймеры (Random6). Реакционную смесь инкубировали при температуре 37 °C в течение 15 минут, после чего при 85 °C в течение 5 секунд с последующим охлаждением до 4 °C. Полученную кДНК перед последующим применением в полимеразной цепной реакции (ПЦР) разводили водой, свободной от РНКаз, в пропорции 1:4.
4. Проведение ПЦР в реальном времени
Реакция ПЦР проводилась в режиме реального времени (RT-PCR) с автоматической регистрацией результатов при помощи амплификатора «QuantStudio5» («ThermoFisher» США). В качестве референсных генов использовались ActB при исследовании клеток кумулюса и GAPDH при исследовании клеточной линии KGN.
При постановке ПЦР использовалась реакционная смесь 5X qPCRmix-HS SYBR PK147 (Евроген, Россия) в объеме 25 мкл. Состав рабочей смеси: 17 мкл воды;5 мкл реакционной смеси 5X qPCRmix-HS SYBR; По 1 мкл прямого и обратного праймеров в концентрации 10пМ; 1 мкл кДНК. Последовательности используемых праймеров представлены в таблице 2.
Таблица 2 – Последовательность синтетических олигонуклеотидов
| Праймеры для первичных кумулюсных клеток | |
|---|---|
| Праймер | Последовательность |
| SRA1 F | CCTGGACGTGTCTCAACTGG |
| SRA1 R | CCCGGAACTCCACTGTTAGC |
| ActB F | TCC CTT GCC ATC CTA AAA GCC ACC C |
| ActB R | CTG GGC CAT TCT CCT TAG AGA GAA G |
| Праймеры для клеточной линии KGN | |
| SRA1_g1 F | ACCAGCATCCATCCTCCACG |
| SRA1_g1 R | GGAGGCGAGGGATGTGTGAA |
| SRA1_m1 F | CGACGGTTGTGAACCAGCAT |
| SRA1_m1 R | GAGGGATGTGTGAAGCGAGC |
| GAPDH F | AGGGCTGCTTTTAACTCTGGT |
| GAPDH R | CCCCACTTGATTTTGGAGGGA |
Программы амплификации ПЦР в реальном времени для представлена в таблице 3.
Таблица 3 – Программы амплификации
| Первичные кумулюсные клетки | ||
|---|---|---|
| Температура, ˚С | Время | Количество циклов |
| 95 | 5 мин | 40 |
| 95 | 15 сек | |
| 60 | 15 сек | |
| 72 | 25 сек | |
| +Plate Read | ||
| Клеточная линия KGN | ||
| Температура, ˚С | Время | Количество циклов |
| 94 | 4 мин | 1 |
| 55 | 30 сек | 30-35 |
| 72 | 1 мин | |
| 72 | 10 мин | |
Оценку изменений в уровне экспрессии исследуемых генов в опытных образцах по сравнению с контрольными проводили с применением стандартного метода 2^(-ΔΔCt) (Livak, 2001). При снижении экспрессии кратность изменения рассчитывали, как 1/2-∆∆Сt. Статистическую значимость различий оценивали при помощи U-критерия Манна-Уитни.
Результаты и обсуждения исследований
1. Экспрессия lncRNA SRA1 в первичных кумулюсных клетках пациентов с СПКЯ
Анализ экспрессии lncRNA SRA1 в кумулюсных клетках выявил тенденцию к её повышению при СПКЯ: коэффициент изменения экспрессии (FC) составил 1.6 при p=0.5 (табл. 4). Однако статистически значимых различий между группами не выявлено.
Таблица 4 – Показатели относительной экспрессии (∆Ct) и степени изменения экспрессии (FC) lncRNA SRA1 в исследуемых группах
| Исследуемая группа | SRA1 |
|---|---|
| Контроль (n=5) | 6.7±0.16 |
| СПКЯ (n=6) | 5.99±0.89 |
| FC | 1.6 (повышение) |
| p=0.5 |
SRA1 кодирует длинную некодирующую РНК (lncRNA) Steroid Receptor RNA Activator, которая выступает в роли транскрипционного коактиватора стероидных рецепторов, включая рецепторы андрогенов, эстрогенов и прогестерона. SRA1 участвует в регуляции стероидогенеза, дифференцировки адипоцитов, глюкозного гомеостаза и инсулиновой чувствительности, а также связан с рядом метаболических и эндокринных заболеваний, включая СПКЯ.
Умеренное повышение экспрессии SRA1 в кумулюсных клетках при СПКЯ может отражать компенсаторную реакцию клеток на гормональный и метаболический дисбаланс. Усиление экспрессии SRA1 способно повышать активность стероидных рецепторов и влиять на транскрипцию генов стероидогенеза, что потенциально связано с гиперандрогенией и нарушением фолликулогенеза, характерными для СПКЯ.
2. Оценка жизнеспособности и транскрипционной активности генов в метаболической модели на клеточной линии KGN
2.1 Жизнеспособность клеток KGN в условиях гипергликемии и гиперинсулинемии
В таблице 6 представлены результаты выживаемости клеточной линии в условиях метаболической модели при разном содержании глюкозы и инсулина.
Таблица 6 – Жизнеспособность (%) клеток линии KGN при добавлении в культуральную среду различных концентраций инсулина и глюкозы
| Номер пробы | Контроль (К) | Глюкоза | Инсулин (И) | Глюкоза+инсулин (Г+И) |
|---|---|---|---|---|
| Вариант | С1 | G1 | I1 | G1+I1 |
| Выживаемость, % | 82.5 | 86.4 | 88.2 | 83.7 |
| Вариант | С2 | G2 | I2 | G2+I2 |
| Выживаемость, % | 91.4 | 84.3 | 84.1 | 86.9 |
| Вариант | С3 | G3 | I3 | G3+I3 |
| Выживаемость, % | 81.9 | 82.7 | 83.1 | 85.3 |
| Вариант | С4 | G4 | I4 | G4+I4 |
| Выживаемость, % | 83.7 | 83.5 | 88.0 | 84.2 |
Данные, полученные в ходе оценки жизнеспособности клеточной линии KGN в метаболической модели с различным содержанием глюкозы и инсулина, показали, что добавление глюкозы в концентрации 80 мг/дл, инсулина в дозе 7 мкЕД/мл, а также их комбинации (130 мг/дл глюкозы + 25 мкЕД/мл инсулина) способствует повышению выживаемости клеток (рисунок 1). Наибольший уровень жизнеспособности зафиксирован при внесении 80 мг/дл глюкозы, 100 мг/дл глюкозы в сочетании с 15 мкЕД/мл инсулина, а также при действии 35 мкЕД/мл инсулина. Подобранные условия моделирования метаболического стресса, не сопровождающиеся выраженной цитотоксичностью, что позволяет использовать их для дальнейших транскрипционных исследований.
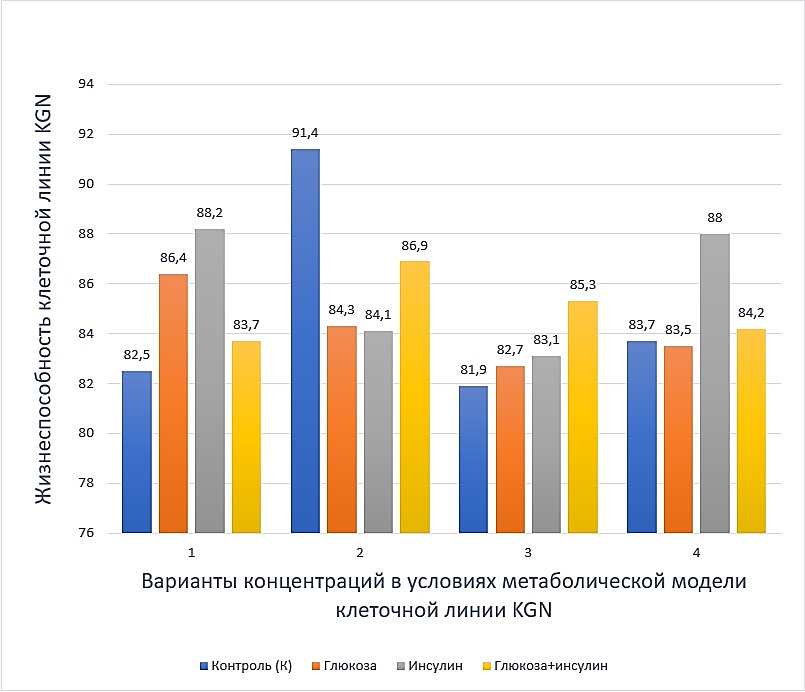
Рисунок 1 – Сравнение уровня жизнеспособности (%) клеточной линии KGN при добавлении в культуральную среду различных концентраций инсулина и глюкозы
Исследование транскрипционной активности двух изоформ днРНК SRA1_g1, SRA1_m1 в условиях метаболической модели клеточной линии KGN свидетельствуют о дифференциальной чувствительности исследованных транскриптов к уровням глюкозы и инсулина.
Оценка жизнеспособности клеток KGN в условиях различного содержания глюкозы и инсулина отображает, что все концентрации не оказывают интенсивного цитотоксического влияния: уровень выживаемости во всех экспериментальных группах составил от 82.7 % до 91.4 %. Наибольшая жизнеспособность зафиксирована при добавлении глюкозы 80 мг/дл (86.4 %), инсулина 35 мкЕД/мл (88 %) и комбинации 100 мг/дл глюкозы с 15 мкЕД/мл инсулина (86.9 %). Важно отметить, что повышение экспрессии исследованных генов наблюдались в условиях, где жизнеспособность сохранялась на стабильном уровне (не ниже 83.5 %), это исключает влияние неспецифического цитотоксического эффекта на транскрипционные изменения.
2.2 Транскрипционная активность генов SRA1_m1, SRA1_g1 в метаболической модели
При изучении транскрипционной активности генов SRA1_m1, SRA1_g1 в метаболической модели клеточной линии KGN было зарегистрировано повышение экспрессии всех генов при определённых метаболических условиях (таблица 7).
Для SRA1_g1 высокая экспрессия зарегистрирована при содержании глюкозы 160 мг/дл через 48 ч культивирования, а также при совместном добавлении 80 мг/дл глюкозы и 7 мкЕД/мл инсулина на 24-й и 48-й час инкубации. В отношении SRA1_m1 пик активности отмечен в среде с глюкозой 160 мг/дл к 48 ч, а также при сочетании 80 мг/дл глюкозы + 7 мкЕД/мл инсулина через 24 и 48 ч культивирования.
Таблица 7 – Показатели относительной экспрессии (∆Ct) lncRNA SRA1_g1, SRA1_m1, в метаболических условиях культивирования
| Исследуемая группа | SRA1_g1 | SRA1_m1 |
|---|---|---|
| C1 (контроль) | 6.46 | 7.25 |
| G1 | 5.56 | 6.48 |
| I1 | 5.12 | 6.76 |
| G1+I1 | 5.50 | 5.26 |
| C2 (контроль) | 6.46 | 7.25 |
| G2 | 5.79 | 6.75 |
| I2 | 5.34 | 6.57 |
| G2+I2 | 5.17 | 6.82 |
| C3 (контроль) | 6.46 | 7.25 |
| G3 | 5.09 | 6.81 |
| I3 | 5.22 | 6.79 |
| G3+I3 | 5.91 | 6.39 |
| C4 (контроль) | 6.46 | 7.25 |
| G4 | 4.19 | 5.06 |
| I4 | 5.51 | 6.91 |
| G4+I4 | 5.89 | 5.29 |
| FC | >1 | >1 |
| p | 0.04 | 0.03 |
Для SRA1_g1 высокая экспрессия зарегистрирована при содержании глюкозы 160 мг/дл через 48 ч культивирования. а также при совместном добавлении 80 мг/дл глюкозы и 7 мкЕД/мл инсулина на 24-й и 48-й час инкубации. В отношении SRA1_m1 пик активности отмечен в среде с глюкозой 160 мг/дл к 48 ч. а также при сочетании 80 мг/дл глюкозы + 7 мкЕД/мл инсулина через 24 и 48 ч культивирования.
Для днРНК SRA1_g1 максимальный уровень экспрессии (Fold Change = 4.8; p = 0.04) зафиксирован в условиях высокой концентрации глюкозы (160 мг/дл) через 48 ч культивирования. а также при сочетании низкой дозы инсулина (7 мкЕД/мл) и физиологической концентрации глюкозы (80 мг/дл) на 24-й и 48-й час. Это позволяет предположить. что данная изоформа является сенсором глюкозного сигнала в гранулёзных клетках. Повышение её экспрессии при гипергликемии может приводить к усилению транскрипции стероидогенных генов за счёт коактивации рецепторов и SF-1. что проявляется гиперандрогенией – ключевым признаком СПКЯ.
Пик экспрессии изоформы SRA1_m1 (мРНК) наблюдался при действии глюкозы 160 мг/дл к 48 ч. а также в условиях комбинации 80 мг/дл глюкозы с 7 мкЕД/мл инсулина (Fold Change = 4.6; p = 0.03). Однако общий уровень её активации был менее выражен. чем у некодирующей изоформы. Это может указывать на то. что кодирующая изоформа SRA1 в большей степени отражает общий транскрипционный ответ клетки на стресс. а её вклад в стероидогенную регуляцию вторичен по сравнению с днРНК. Умеренное повышение SRA1_m1 может быть связано с усилением трансляции белка SRA1. который выполняет вспомогательные функции в цитоплазме. однако не является основным драйвером гиперандрогении.
Заключение
При изучении экспрессии lncRNA SRA1 в кумулюсных клетках и клеточной линии KGN были получены различные результаты. В метаболической модели наблюдали повышенную активность двух изоформ lncRNA SRA1 в условиях гиперинсуленемии. в то время как в кумулюсных клетках. обработанных антоганистами ГнРГ. было зарегистрировано умеренное повышение активности гена. Причиной таких показателей могут быть неоднородные физиологические характеристики двух клеточных культур. Клетки KGN являются опухолеподобными и демонстрирует геномную нестабильность. в отличии от нативных компонентов репродуктивной системы. Активность исследованного гена предположительно свидетельствует об его участии в регуляции метаболических нарушений. таких как инсулинорезистентность и гиперандрогения. являющихся ключевыми признаками СПКЯ.
Таким образом. выявление регуляторных молекул lncRNA. а также анализ их ответа на метаболическую стимуляцию. способствует пониманию механизмов развития заболеваний и поиску новых мишеней для терапевтической коррекции.
Финансирование
Работа выполнена при финансовой поддержке Министерства науки и высшего образования РФ в рамках государственного задания в сфере научной деятельности FENW-2026-0030. и при финансовой поддержке Российского научного фонда. проект № 23–15-00464.
Список литературы
- Алиева Ф. Синдром поликистозных яичников и инсулинорезистентность: современное состояние проблемы // Акушерство и гинекология. – 2017. – № 12. – С. 32-37.
- Бурлакова Е.С.. Меркулова А.Е.. Логинова Е.А.. Кшнясева С.К.. Константинова О.Д. Связь инсулинорезистентности и синдрома поликистозных яичников: влияние на репродуктивную функцию женщины // Проблемы репродукции. – 2022. – Т. 28. № 2. – С. 47–52. https://doi.org/10.17116/repro20222802147
- Владимирова И.В.. Калинина Е.А.. Донников А.Е. Молекулярно-генетические маркеры как прогностические факторы овариального ответа в программах ВРТ // Акушерство и гинекология. – 2014. – №. 3. – С. 16-20.
- Найдукова А.А.. Каприна Е.К.. Донников А.Е.. Чернуха Г.Е. Генетические аспекты формирования синдрома поликистозных яичников // Акушерство и гинекология. – 2016. – № 3. – С. 16-23. https://dx.doi.org/10.18565/aig.2016.3.16-22
- Овчаренко Д.В.. Попов А.А.. Коваль А.А.. Тюрина С.С.. Федоров А.А. Влияние питательных веществ на метаболические нарушения. ассоциированные с синдромом поликистозных яичников // Российский вестник акушера-гинеколога. – 2020. – Т. 20. № 4. – С. 27–33. https://doi.org/10.17116/rosakush20202004127
- Сафронова Н.А.. Калинина Е.А.. Донников А.Е.. Бурменская О.В.. Макарова Н.П.. Кулакова Е.В.. Алиева К.У. Перспективы исследования маркеров клеток кумулюса для оценки качества ооцитов и эмбрионов в программах вспомогательных репродуктивных технологий // Акушерство и гинекология. – 2015. – № 12. – С. 21-25.
- Ali R.M. Upregulation of the lncRNAs steroid receptor RNA activator (SRA) and c-terminal binding protein 1 antisense (CTBP1-AS) in the granulosa cells of patients with polycystic ovary syndrome // Живые и биокосные системы. – 2023. – № 46. – URL: https://jbks.ru/archive/issue-46/article-7
- Cara J. Insulin and androgen relationships in PCOS // Journal of Clinical Endocrinology Metabolism. – 2021. – V. 106. № 8. – P. 2321-2333.
- Diamanti-Kandarakis E.. Christakou C. D. Insulin resistance in PCOS //Diagnosis and management of polycystic ovary syndrome. – 2009. – С. 35-61.
- Jin Y.. Sun F.. Yang A.. Yu X.. Li Y.. Liang S.. Jing X.. Wang K.. Zhang L.. Xiao S.. Zhang W.. Wang X.. Zhao G.. Gao B. Insulin-like growth factor binding protein-1 and insulin in polycystic ovary syndrome: a systematic review and meta-analysis // Frontiers in Endocrinology. – 2023. – V. 14. – Art. 1279717.
- Kim L.K.. Park S.A.. Yang Y.. Kim Y.T.. Heo T.H.. Kim H.J. LncRNA SRA mediates cell migration. invasion. and progression of ovarian cancer via NOTCH signaling and epithelial-mesenchymal transition // Biosci Rep. – 2021. – V. 41. № 9. – P. BSR20210565.
- Lan Y.. Zhong C.. Li D.. Chen H.. Dai X. Association between waist-to-height ratio and insulin resistance in patients with polycystic ovary syndrome: a meta-analysis // Frontiers in endocrinology. – 2025. – V. 16. № 10. – Art. 1567787.
- Nestler J. Insulin and androgen production in PCOS // Journal of Clinical Endocrinology Metabolism. – 2020. – V. 106. № 8. – P. 2321-2333.
- Peng M.. Zhang X.. Yang X.. Ye Т.. Liu B. Role and interaction of LncRNAs and insulin resistance in polycystic ovary syndrome: a narrative review // Journal of Ovarian Research. – 2025. – V. 18. № 1. – Art. 267.
- Phy J. L. et al. Insulin and messenger ribonucleic acid expression of insulin receptor isoforms in ovarian follicles from nonhirsute ovulatory women and polycystic ovary syndrome patients //The Journal of Clinical Endocrinology & Metabolism. – 2004. – Т. 89. – №. 7. – С. 3561-3566.
- Pratama G.. Wiweko B.. Asmarinah. Widyahening I.S.. Andraini T.. Bayuaji H.. Hestiantoro A. Mechanism of elevated LH/FSH ratio in lean PCOS revisited: a path analysis // Sci Rep. – 2024. – V. 14. № 1. – P. 8229. https://doi.org/10.1038/s41598-024-58064-0
- Tu J.. Cheung A.H.. Chan C.L.. Chan W.Y. The Role of microRNAs in Ovarian Granulosa Cells in Health and Disease // Front Endocrinol (Lausanne). – 2019. – V. 10. – P. 174. https://doi.org/10.3389/fendo.2019.00174Tu M.. Wu Y.. Mu L.. Zhang D. Long non-coding RNAs: novel players in the pathogenesis of polycystic ovary syndrome // Ann Transl Med. – 2021. – V. 9. № 2. – P. 173. DOI: 10.21037/ATM-20-5044.
- Turathum B.. Gao E.M.. Chian R.C. The Function of Cumulus Cells in Oocyte Growth and Maturation and in Subsequent Ovulation and Fertilization // Cells. – 2021. – V. 10. № 9. – P. 2292. https://doi.org/10.3390/cells10092292
- Vink J.M.. Sadrzadeh S.. Lambalk C.B.. Boomsma D.I. Heritability of polycystic ovary syndrome in a Dutch twin-family study // The Journal of Clinical Endocrinology & Metabolism. 2006. Vol. 91. No. 6. P. 2100–2104. DOI: 10.1210/jc.2005-1494.
- Zhang Q. The role of immunity in insulin resistance in patients with polycystic ovary syndrome // Frontiers in Endocrinology. – 2025. – V. 16. – Art. 1501115.
Статья поступила в редакцию 10 июня 2026 г.
Поступила после доработки 24 июня 2026 г.
Принята к печати 28 июня 2026 г.
Received 10, June, 2026
Revised 24, June, 2026
Accepted 28, June, 2026