

Введение COVID-19, вызванный высокопатогенным вирусом человека SARS-CoV-2 (коронавирусом, вызывающим тяжелый острый респираторный синдром), — это потенциально смертельное заболевание, представляющее серьезную угрозу для общественного здравоохранения во всем мире (Nile S.H. et al., 2020). SARS-CoV-2 в первую очередь поражает нижние дыхательные пути и приводит к широкому спектру клинических проявлений — от бессимптомного течения и легких симптомов до тяжелых, угрожающих жизни инфекций и летальных исходов (Shoraka S. Et al., 2021). Предполагаемый механизм развития COVID-19 связан с нарушением регуляции цитокинов, известным как цитокиновый шторм, который существенно влияет на тяжесть заболевания (Ghazavi A. et al., 2021). Крайне важно выявить точные и подходящие прогностические факторы, чтобы различать пациентов с легкой, средней и тяжелой формой заболевания, прогнозировать его развитие, определять исходы и предсказывать заболеваемость и смертность среди пациентов с COVID-19 (Rahni Z., et al., 2023).
В различных исследованиях высказывается предположение, что оценка изменений в стандартных показателях крови, включая гематологические, биохимические и иммунологические биомаркеры, может помочь в прогнозировании течения заболевания и смертности. Например, у пациентов, которые не выжили, наблюдался повышенный уровень лейкоцитов и нейтрофилов, а также лимфопения и эозинопения. Кроме того, такие маркеры, как скорость оседания эритроцитов, международное нормализованное отношение, протромбиновое время, С-реактивный белок, D-димер и ферритин, являются значимыми факторами, связанными со смертностью (Huyut et al., 2022; Mertoglu et al., 2021; Huyut and Huyut, 2023). Однако COVID-19 — это сложное заболевание, на которое влияет множество факторов, таких как возраст, сопутствующие заболевания и генетическая предрасположенность. Хорошо известно, что генетическая предрасположенность хозяина играет важную роль в проникновении вируса, иммунных реакциях и вирусных инфекциях (Debnath et al., 2020; Nguyen et al., 2023).
В последние годы некодирующий транскриптом человека оценивается учеными, фармакологами и медиками как возможность для разработки принципиально новых терапевтических стратегий и открытия биомаркеров многих заболеваний. Длинные некодирующие РНК (днРНК) лежат в основе тонкой регуляции сложных генных сетей на уровне эпигенетических изменений, транскрипции и посттранскрипционных преобразований, передавая и координируя информационные потоки, необходимые для функционирования сигнальных путей эукариотических клеток. ДнРНК представляют собой одноцепочечные РНК длинной более 200 пар оснований, осуществляющие регуляцию экспрессии генов, созревания белков и многие другие функции, в том числе благодаря связыванию и ингибированию микроРНК, которые, в свою очередь, ингибируют мРНК (Zhang P., et al.,2019). Они формируют сложный профиль активности, связанный с инфекцией, и могут действовать как «губки», модулируя регуляторную активность микроРНК и реакцию на инфекцию (Xia D,et al., 2020).
Врожденный иммунитет играет важнейшую роль в первичной защите от инфекций, и недавние исследования показали, что днРНК играют ключевую роль в регуляции врожденных иммунных реакций. Во время вирусной инвазии клетки организма могут распознавать компоненты вируса как молекулярные паттерны, ассоциированные с патогенами, с помощью рецепторов распознавания патогенов (PRR) на поверхности клетки (Толл-подобные рецепторы (TLR) 2 и 4). Доказано, что TLR2 и TLR4 способны индуцировать экспрессию различных дн РНК. Кроме того, PRR-зависимые сигнальные пути активируют факторы транскрипции, такие как NF-κB, IRF-3 и IRF-7. После этой активации экспрессируются интерфероны, хемокины и цитокины (Schneider W. Et al., 2014; Iwasaki A., Pillai P.S., 2014; Ouyang J. et al., 2016). Показано, что днРНК играют регулирующую роль в сигнальном пути интерферона, активации сигнальных путей JAK-STAT и NF-κB, а также в выработке цитокинов и хемокинов при заражении респираторными вирусами, такими как вирус гриппа А , респираторно-синцитиальный вирус и SARS-CoV-2 (Kesheh et al., 2022; Pan et al., 2019; Wu et al., 2021). Согласно многочисленным исследованиям, сигнальные пути NF-κB сильно активированы у пациентов с COVID-19 (Amini-Farsani et al., 2021; Hadjadj et al., 2020; Sohn et al., 2020; García, 2020; Zhou et al., 2020), и многие днРНК влияют на эти пути, в том числе ANRIL, NEAT1 и MALAT1, которые участвуют в регуляции сигнальных путей NF-κB (Zhou et al., 2016; Gong et al., 2020; Chen et al., 2018; Huang et al., 2022
Целью данного исследования было изучение влияния полиморфизма генов длинных некодирующих РНК ANRIL (rs564398), MALAT1 (rs3200401) и NEAT1 (rs674485) на тяжесть течения COVID-19.
Материалы и методы исследования
Объект исследования
Объектами исследования послужили образцы ДНК, полученные из периферической крови 349 человек обоего пола в возрасте 22-75 лет с разной тяжестью COVID-19. Среди них: 207 пациентов с легкой, 142 с тяжелой формой заболевания. Образцы были собраны в период с марта 2021 по июль 2021 в медицинском центре «Наука» (Ростов-на-Дону, Российская Федерация). Степень тяжести COVID-19 была определена в соответствии с рекомендациями Министерства здравоохранения Российской Федерации. Пациенты в исследуемых группах были сопоставимы по возрасту и полу (p>0,05).
Для всех участников было получено информированное согласие на проведение исследований. Дизайн исследования был утверждён комитетом по биоэтике Академии биологии и медицины имени Д. И. Ивановского Южного федерального университета. Применяемые методы были выполнены с соблюдением Хельсинкской декларации Всемирной медицинской ассоциации «Этические принципы проведения научных
медицинских исследований с участием человека» (World Medical Association Declaration of Helsinki: ethical principles for medical research involving human subjects, 2013).
Генотипирование
Образцы венозной крови пациентов COVID-19 отбирали в пост-коронавирусный период (не менее двух месяцев после выздоровления). Выделение ДНК из лейкоцитов крови проводили методом термокоагуляции с использованием реагентов «ДНК-экспресс-кровь» (Литех, Россия). Количество ДНК оценивали с использованием «NanoDrop Lite» (Thermo Fisher Scientific, США).
Генотипирование SNP осуществляли методом аллель-специфической ПЦР с использованием аллель-специфичных TaqMan-зондов. для проведения реакции амплификации использовался амплификатор «Applied Biosystems QuantStudio 5» («Life Technologies Holdings Pte. Ltd.», Сингапур). Дизайн аллель-специфичных праймеров и зондов ( табл.1) для генотипирования полиморфных локусов генов днРНК: ANRIL (rs564398), MALAT1 (rs3200401) и NEAT1 (rs674485) был выполнен с использованием Primer-BLAST (https://www.ncbi.nlm.nih.gov/tools/primer-blast/).
Таблица 1 - Последовательности специфических праймеров и зондов, использованных для генотипирования ANRIL (rs564398), MALAT1 (rs3200401) и NEAT1 (rs674485)
| Праймеры (5ˈ – 3ˈ) | Зонды (5ˈ – 3ˈ) | |||
|---|---|---|---|---|
| ANRIL rs564398 | прямой | GGCCTCAGTGGCACATACC | Аллель T | FAM-GACTTTCTTTGTGGTAGTTAGGG- BHQ-1 |
| обратный | GGTGTCCATGCTGTGATGATTC | Аллель C | ROX-GACTTTCTTTGCGGTAGTTAGGG-BHQ-2 | |
| MALAT1 rs3200401 | прямой | ATTTGGAGGGATGGGAG | Аллель C | FAM-GACTTCAGGTCTGTCTG-BHQ-1 |
| обратный | TTCTAATAGCAGCGGGAT | Аллель T | ROX-GACTTCAGGTTTGTCTG-BHQ-2 | |
| NEAT1 rs674485 | прямой | GAACCCACCTCCTGTGGC | Аллель G | FAM-GTGAGGGTGGTTGTCACAGTGG- BHQ-1 |
| обратный | ATGGGGAAATGGAGAGTCAGGG | Аллель A | ROX-GTGAGGGTGGTTATCACAGTGG-BHQ-2 | |
Статистическая обработка
Статистическую обработку результатов проводили с использованием программного обеспечения «Статистика 13» и онлайн-калькуляторов, предоставляемых электронным ресурсом https://medstatistic.ru/calculators.html. Для определения популяционного равновесия частот аллельных вариантов генов выявлялось соответствие закону Харди-Вайнберга (HWE) при помощи электронного ресурса https://wpcalc.com/en/equilibrium-hardy-weinberg/. Для исключения эффекта небольшого размера выборки использовали точный критерий Фишера. При сравнении частот аллелей и генотипов по качественному бинарному признаку использовался критерий χ2. Различия считались статистически значимыми при p<0,05. Степень риска оценивали по величине отношения шансов (ОШ) с расчётом 95 % доверительного интервала (ДИ). С целью исключения ошибки первого рода при множественных сравнениях в анализе отношения шансов была введена поправка Бонферрони. Анализ межгенных взаимодействий проводили с использованием Multifactor Dimensionality Reduction MDR 3.0.2. Вклад каждого полиморфизма в риск тяжелого COVID-19 в виде дендрограммы и/или схемы Фрюхтерман–Рейнгольда, оптимальной моделью считается модель с воспроизводимостью (Cross-validation) не менее 8/10 и точностью предсказания (Testing balanced accuracy) не менее 70 %.
Результаты исследования
В настоящем исследовании были генотипированы полиморфные локусы генов днРНК ANRIL rs564398, MALAT1 rs3200401 и NEAT1 rs674485 для выявления их ассоциации с тяжестью COVID-19 у пациентов Ростовской области. Результаты представлены в таблице 2. Распределение генотипов у пациентов с легкой формой COVID-19 по полиморфным локусам ANRIL rs564398, MALAT1 rs3200401 и NEAT1 rs674485 соответствовало равновесию Харди-Вейнберга (p=0,07, p=0,11 и р = 0,08 соответственно).
Таблица 2 – Частоты аллелей и генотипов в группах с лёгким и тяжёлым течением COVID-19 по полиморфным локусам ANRIL rs564398, MALAT1 rs3200401 и NEAT1 rs674485
| Генотип/ Аллель | Частота Абс. (%) | p- значение (χ2) | ОШ (95 % ДИ) | |
|---|---|---|---|---|
| Лёгкое течение (n=207) | Тяжёлое течение (n=142) | |||
| ANRIL rs564398 | ||||
| Т/Т | 179 (86,47) | 107 (75,35) | 0,01 (8,69) | 0,48 (0,28-0,83) |
| Т/С | 25 (12,08) | 34 (23,94) | 2,29 (1,30-4,04) | |
| С/С | 3 (1,45) | 1 (0,71) | 0,48 (0,05-4,68) | |
| Т/С+ С/С | 28 (13,53) | 35 (24,65) | 0,008 (7,04) | 2,09 (1,20-3,63) |
| Т | 383 (92,51) | 248 (87,32) | 0,02 (5,23) | 0,56 (0,34-0,93) |
| С | 31 (7,49) | 36 (12,68) | 1,79 (1,08-2,97) | |
| MALAT1 rs3200401 | ||||
| С/С | 143 (69,08) | 97 (68,31) | 0,94 (0,14) | 0,97 (0,61-1,53) |
| С/Т | 54 (26,09) | 39 (27,46) | 1,07 (0,66-1,74) | |
| Т/Т | 10 (4,83) | 6 (4,23) | 0,87 (0,31-2,45) | |
| С/Т+ Т/Т | 64 (30,92) | 45 (31,69) | 0,88 (0,02) | 1,04 (0,65-1,64) |
| С | 340 (82,13) | 233 (82,04) | 0,98 (0,001) | 0,99 (0,67-1,47) |
| Т | 74 (17,87) | 51 (17,96) | 1,01(0,68-1,49) | |
| NEAT1 rs674485 | ||||
| G/G | 39 (18,84) | 26 (18,31) | 0,02 (8,34) | 0,97 (0,56-1,67) |
| G/A | 87 (42,03) | 40 (28,17) | 0,54 (0,34-0,86) | |
| A/A | 81 (39,13) | 76 (53,52) | 1,79 (1,16-2,76) | |
| G/A+ A/A | 168 (81,16) | 116 (81,69) | 0,90 (0,02) | 1,04 (0,59-1,79) |
| G | 165 (39,86) | 92 (32,39) | 0,04 (4,03) | 0,72 (0,53-0,99) |
| A | 249 (60,14) | 192 (67,61) | 1,38 (1,01-1,89) | |
В результате исследования установлено, что генотип T/T полиморфного локуса ANRIL rs564398 оказывает защитное действие против тяжелого COVID-19 (ОШ=0,48; 95 % ДИ 0,28-0,83). При этом, у пациентов с генотипом T/C риск тяжелого течения COVID-19 оказался в 2 раза выше (ОШ=2,29; 95 % ДИ 1,30-4,04). Гомозиготный генотип по минорному аллелю C/C не показал ассоциации с тяжелым течением заболевания, что может быть следствием низкой частоты этого генотипа в группах пациентов в обеих группах. Анализ частоты аллелей выявил протекторный эффект аллеля T для пациентов с легким течением COVID-19, в то время как минорный аллель C можно рассматривать как фактор риска развития тяжелых симптомов COVID-19.
Анализ результатов исследования полиморфизма гена NEAT1 rs674485 показал, что у пациентов с гомозиготным генотипом AA наблюдается высокий риск тяжелого течения COVID-19 (p=0,02; ОШ=1,79; 95 % ДИ 1,16-2,76). Кроме того, аллель А повышает риск развития тяжелых клинических симптомов (p=0,04; ОШ=1,38; 95 % ДИ 1,01-1,89,
при этом минорный аллель G оказывает защитное действие и чаще встречается у пациентов с легкой формой COVID-19 (p=0,04; ОШ=0,72; 95 % ДИ 0,53-0,99).
В результате проведенного исследования значимых различий в распределении частот аллелей и генотипов полиморфного локуса rs3200401 гена MALAT1 между группами пациентов с легким и тяжелым течением COVID-19 выявлено не было.
В данной работе были изучены межгенные взаимодействия полиморфных локусов генов длинных некодирующих РНК при разных формах COVID-19 с помощью алгоритма MDR. Статистические характеристики моделей представлены в таблице 3.
Таблица 3 – Характеристики моделей межгенных взаимодействий ANRIL rs564398, MALAT1 rs3200401, и NEAT1 rs674485
| Комбинации локусов в модели | Опытная взвешенная точность | Контрольная взвешенная точность | p-значение (χ2) | Воспроизводимость модели (CV consistency) |
|---|---|---|---|---|
| ANRIL rs564398 и NEAT1 rs674485 | 0,58 | 0,60 | <0,0001 (19,72) | 9/10 |
| ANRIL rs564398, MALAT1 rs3200401, и NEAT1 rs674485 | 0,54 | 0,56 | <0,0009 (10,96) | 10/10 |
Двухлокусная модель полиморфных ANRIL rs564398 и NEAT1 rs674485 показала хорошую предсказательную способность тяжести течения COVID-19. Сочетание генотипа (TT) по полиморфному локусу rs564398 гена ANRIL с генотипом (GA) по полиморфному локусу rs674485 гена NEAT1 чаще встречалось среди пациентов с легкой формой COVID-19 (p=0,005; χ2= 8,14; ОШ=0,48; 95 % ДИ 0,29-0,79). Кроме того, сочетание генотипов ANRIL rs564398 (ТC) * NEAT1 rs674485 (АА) показало ассоциацию с повышением риска тяжелого состояния при COVID-19 (p=0,004; χ2= 8,51; ОШ=3,63; 95 % ДИ 1,45-9,07). Частота сочетаний данных двух локусов у пациентов COVID-19 показана на рисунке 1.
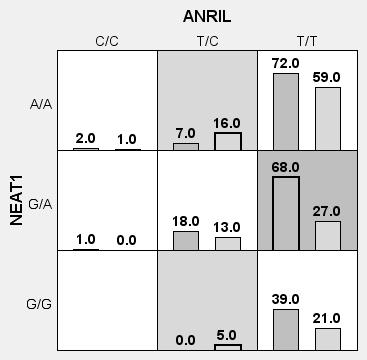
Рисунок 1– Распределение сочетаний генотипов по полиморфным локусам ANRIL rs564398 и NEAT1 rs674485 у пациентов с легкой и тяжелой COVID-19. Белые ячейки: отсутствуют статистически значимые различия, левые столбцы: пациенты с легкой формой COVID-19, правые столбцы: пациенты с тяжелой формой COVID-19
Сочетания генотипов по полиморфным локусам ANRIL rs564398, MALAT1 rs3200401, и NEAT1 rs674485 представлены на рисунке 2. Трехлокусная модель генотипов ANRIL rs564398 (ТС) * MALAT1 rs3200401 (СС) * NEAT1 rs674485 (АА) оказалась значимой и может оцениваться как фактор риска тяжелой формы COVID-19 (p=0,009; χ2= 6,92; ОШ=4,26; 95 % ДИ 1,33-13,67). С другой стороны, сочетание генотипов ANRIL rs564398 (ТТ) * MALAT1 rs3200401 (СС) * NEAT1 rs674485 (GА) показало значимый защитный эффект и чаще встречалось у пациентов легкой формы заболевания (p=0,04; χ2= 4.04; ОШ=0.56; 95 % ДИ 0.31-0.99).
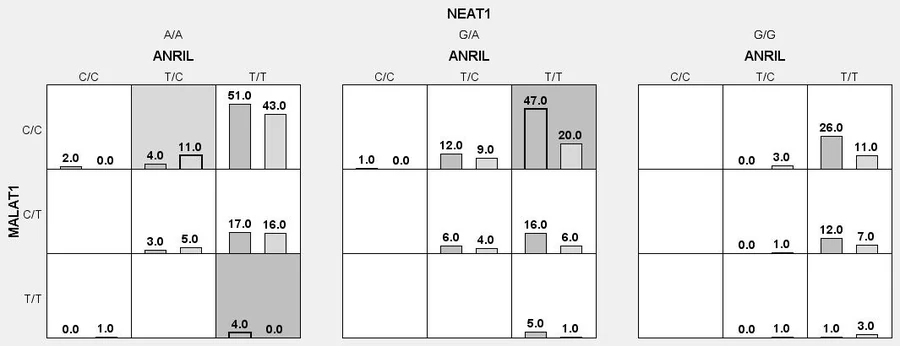
Рисунок 2– Распределение сочетаний генотипов по полиморфным локусам ANRIL rs564398, MALAT1 rs3200401, и NEAT1 rs674485 у пациентов с легкой и тяжелой COVID-19. Белые ячейки: отсутствуют статистически значимые различия, левые столбцы: пациенты с легкой формой COVID-19, правые столбцы: пациенты с тяжелой формой COVID-19
Графическое изображение межгенных взаимодействий полиморфных локусов генов д н РНК при COVID-19 показано на схеме Фрюхтермана-Рейнгольда и в дендрограмме (рисунок 3). ANRIL rs564398 и NEAT1 rs674485 имеют сходную энтропию (1,77 и 1,74 %, соответственно). Наименьшая энтропия наблюдалась для полиморфного локуса MALAT1 rs3200401 (0,03 %), который не показал ассоциации с тяжестью заболевания. Для ANRIL rs564398 зарегистрирован синергизм с NEAT1 rs674485 (0,59 %). С другой стороны, анализ MDR показал антагонистические взаимодействия ANRIL rs564398 с MALAT1 rs3200401 и NEAT1 rs674485 с MALAT1 rs3200401(-0,57 % и -0,33 %, соответственно).
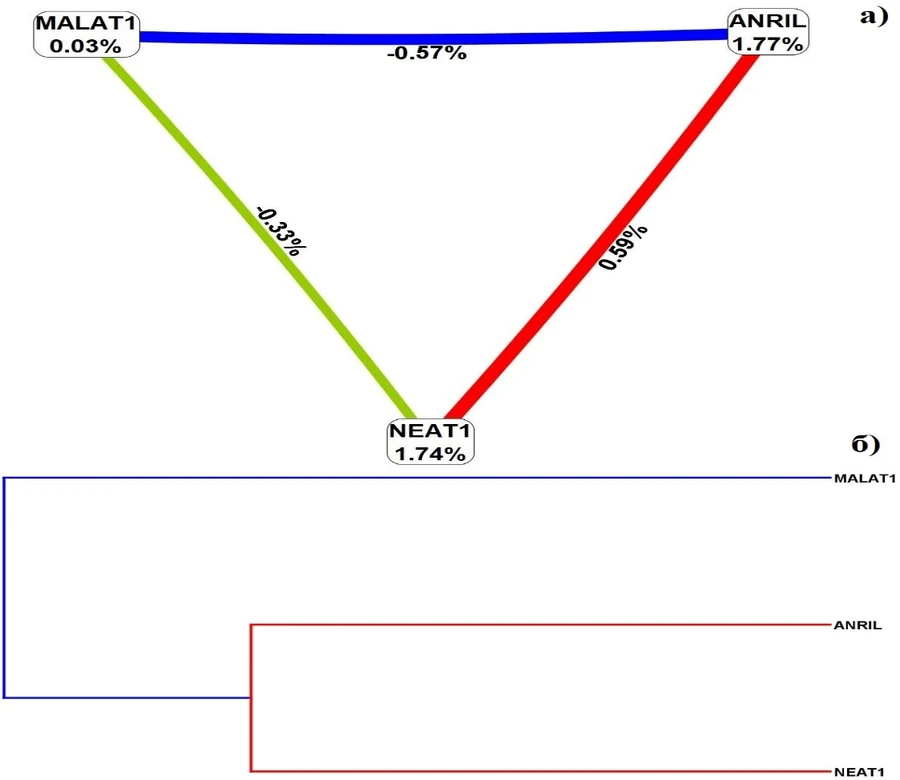
Рисунок 3– а) Схема Фрюхтерман–Рейнгольда и б) дендрограмма межгенных взаимодействий ANRIL rs564398, MALAT1 rs3200401, и NEAT1 rs674485 у пациентов с легкой и тяжелой COVID-19. Красный цвет обозначает высокую степень синергичного взаимодействия, зеленый и синий — антагонизм эффектов с меньшей и большей степенью, соответственно
Обсуждение
Длинные днРНК могут выполнять важные регуляторные функции при взаимодействии вируса и организма-хозяина, включая контроль противовирусного ответа, прямое и косвенное участие в транскрипции вирусных и клеточных генов, а также регуляцию стабильности и трансляции мРНК. Также установлено, что вирусные белки способны влиять на уровень экспрессии клеточных днРНК (Tayel S. I. Et al., 2022). Одной из характерных особенностей COVID-19 является чрезмерно выраженное воспаление, играющее ключевую роль в патогенезе заболевания. В связи с этим выявление факторов воспаления, взаимодействующих с SARS-CoV-2, может иметь огромное значение для ведения пациентов и оценки тяжести течения болезни (Abbasi-Kolli M. Et al., 2022).
Антисмысловая некодирующая РНК lncRNA в локусе INK4 (ANRIL) транскрибируется с хромосомы 9p21 (Zhou et al., 2016), которая является «горячей точкой» для развития ишемической болезни сердца (ИБС) (McPherson et al., 2007). Этот локус также связан с открытоугольной глаукомой, диабетом, пародонтитом и различными видами рака (Congrains et al., 2013). Результаты, полученные Rahni et al. (2023) показали, что уровнень экспрессии ANRIL повышен у пациентов с тяжелым течением COVID-19 по сравнению с пациентами со средней степенью тяжести и по сравнению со здоровыми людьми из контрольной группы. Механизм действия ANRIL при COVID-19 до конца не изучен. Zhou et al. (2016) впервые выявили ассоциацию между сигнальными путями ANRIL и NF-ĸB, предположив, что ANRIL регулирует экспрессию генов интерлейкинов IL6 и IL8 посредством связывания с транскрипционным фактором NF-ĸB. Согласно нашим результатам генотипирования локуса ANRIL rs564398, у пациентов с тяжелой формой COVID-19 по сравнению с легкой достоверно чаще регистрируется генотип T/C и аллель С (табл. 2), что указывает на их ассоциацию с тяжестью заболевания.
NEAT-1 (Nuclear Paraspeckle Assembly Transcript 1) это еще одна днРНК, роль которой была выявлена в сигнальном пути NF-κB. Было показано, что ингибирование NEAT-1 предотвращает активацию этого пути (de Jaegere T. M. H et al., 2020), а также индуцирует экспрессию провоспалительных цитокинов, таких как IL-8 и IL-6 и усиливает воспаление за счет ускорения сборки и активации инфламмасом (Wasilewski P. G. et al., 2020). Согласно имеющимся данным, NEAT-1, вероятно, участвует в работе регуляторной сети «ncRNA–mRNA», контролирующей воспаление. Известно, что NEAT1 играет роль в воспалительной активности иммунных клеток, включая макрофаги и моноциты (Pan et al., 2022). Недавнее исследование показало, что N-белок вируса SARS-CoV-2 усугубляет воспаление посредством механизма, зависящего от NEAT1, который запускает гликолитическое перепрограммирование и нарушает гомеостаз митохондриального эндоплазматического ретикулума (Qing et al., 2026). NEAT-1 может регулировать гены, связанные с воспалением (HIF1a, CCR7 и TLR4) у пациентов с SARS-CoV2, и уровень их транскриптов положительно коррелирует с тяжестью заболевания (Meydan C.et al., 2020а). Показано, что NEAT1 чрезмерно экспрессируется в периферической крови пациентов с COVID-19 (Tayel et al., 2022). В исследовании Abbasi-Kolli M (2026) не нашли значимых различий между пациентами и здоровыми людьми по уровню экспрессии гена NEAT1. Rodrigues A. C. et al.(2021) исследовали экспрессию miR-3142, MALAT-1 и NEAT-1 в образцах мазков из носоглотки и слюны пациентов с COVID-19. Они обнаружили, что уровень экспрессии NEAT-1 и MALAT-1 в образцах, положительных на SARS-CoV-2, был выше, чем у здоровых людей из контрольной группы. Кроме того, они предположили, что уровень NEAT-1 в слюне может служить потенциальным биомаркером для дифференциации здоровых людей от пациентов с COVID-19.Значимость полиморфизма NEAT1 rs674485 в развитии тяжелой формы COVID-19 выявлена в результате нашего исследования.
ДнРНК, MALAT1 (транскрипт 1 метастазирующей аденокарциномы легких), расположена на хромосоме 11q13.1. Имеются данные об ассоцииации с воспалением, вызванным COVID-19 (Meydan et al., 2020, Tang et al., 2020). Huang et al. (2022) показали, что MALAT1 дифференциально экспрессируется у пациентов с легкой и тяжелой формами COVID-19 и, следовательно, может служить мишенью для диагностических мер или терапии, связанных с тяжестью заболевания. Доказана ключевая роль MALAT1 в регуляции широкого спектра генов, вовлеченных в сигнальные пути TGF-β1/Smad2/3-, PI3K/AKT/mTOR- и связанных с модуляцией ЭМП, воспаления в легочной ткани и воспаления при SARS-CoV-2 (Ghafouri-Fard S.,et. аl, 2021). Показано, что уровень экспрессии гена MALAT-1 значительно повышен в острой фазе COVID-19 по сравнению со здоровой контрольной группой (Abbasi-Kolli M. et al., 2022). В другом исследовании, проведенном Huang F., et al (2023), сообщили, что экспрессия NEAT-1 и MALAT-1 значительно повышена у пациентов с тяжелой формой COVID-19 по сравнению с пациентами с легкой формой COVID-19, и предположили, что NEAT-1 и MALAT-1 способствуют повреждению клеток и стрессу в них. Полиморфизм локуса rs3200401 гена MALAT1 может привести к нарушению вторичной структуры MALAT1 или изменить ее динамические взаимодействия (Ismail et al., 2022). Однако анализ результатов нашего исследования достоверных отличий по полиморфизму MALAT1 rs3200401 между группами не показал. Сходный результат получен в результате анализа межгенных взаимодействий: наименьшая энтропия зарегистрирована для полиморфного локуса MALAT1 rs3200401. При этом трехлокусная модель генотипов ANRIL rs564398 (ТС) * MALAT1 rs3200401 (СС) * NEAT1 rs674485 (АА) оказалась значимой и может оцениваться как фактор риска тяжелой формы COVID-19.
Заключение
Благодаря растущему пониманию взаимодействия SARS-CoV-2 с некодирующими РНК хозяина, можно предположить, что SARS-CoV-2 может изменять иммунологический ответ с помощью некодирующих РНК, которые в настоящее время оцениваются как возможность открытия новых терапевтических стратегий и определения биомаркеров сложных заболеваний. Выявление днРНК, участвующих в воспалительной реакции, вызванной COVID-19, может служить прогностическим биомаркером и потенциальной терапевтической мишенью для пациентов, инфицированных SARS-CoV-2. Настоящее исследование показывает, что полиморфизм днРНК ANRIL, MALAT1 и NEAT1 обладает хорошей чувствительностью для прогнозирования тяжести COVID-19, что может помочь в классификации заболевания, поиске биомаркеров и рассматриваться как ценная терапевтическая мишень для лечения COVID-19.
Работа выполнена при финансовой поддержке Министерства науки и высшего образования РФ в рамках государственного задания в сфере научной деятельности № FENW-2026-0030
Литература / References
- Abbasi-Kolli M, Sadri Nahand J, Kiani SJ, Khanaliha K, Khatami A, Taghizadieh M, Torkamani AR, Babakhaniyan K, Bokharaei-Salim F. The expression patterns of MALAT-1, NEAT-1, THRIL, and miR-155-5p in the acute to the post-acute phase of COVID-19 disease. Braz J Infect Dis. 2022 May-Jun;26(3):102354. doi: 10.1016/j.bjid.2022.102354.
- Amini-Farsani Z., Yadollahi-Farsani M., Arab S., Forouzanfar F., Yadollahi M., Asgharzade S. Prediction and analysis of microRNAs involved in COVID-19 inflammatory processes associated with the NF-kB and JAK/STAT signaling pathways. Int. Immunopharmacol. 2021 Nov:100:108071. doi: 10.1016/j.intimp.2021.108071.
- Chen Y., Qiu J., Chen B., Lin Y., Chen Y., Xie G., et al. RETRACTED: long non-coding RNA NEAT1 plays an important role in sepsis-induced acute kidney injury by targeting miR-204 and modulating the NF-κB pathway. Int. Immunopharmacol. 2018;59:252–260. doi: 10.1016/j.intimp.2018.03.023.
- Congrains A., Kamide K., Oguro R., Yasuda O., Miyata K., Yamamoto E., et al. Genetic variants at the 9p21 locus contribute to atherosclerosis through modulation of ANRIL and CDKN2A/B. Atherosclerosis. 2012;220(2):449–455. doi: 10.1016/j.atherosclerosis.
- de Jaegere T. M. H., Krdzalic J., Fasen B. A. C. M., and Kwee R. M., "Radiological Society of North America chest ct classification system for reporting covid-19 pneumonia: Interobserver variability and correlation with reverse-transcription polymerase chain reaction," Radiol Cardiothorac Imaging, vol. 2, no. 3, Jun. 2020, doi: 10.1148/ryct.2020200213
- Debnath M., Banerjee M., Berk M. Genetic gateways to COVID-19 infection: implications for risk, severity, and outcomes. FASEB J. 2020;34(7):8787. doi: 10.1096/fj.202001115R.
- García L.F. Immune response, inflammation, and the clinical spectrum of COVID-19. Front. Immunol. 2020;11:1441. doi: 10.3389/fimmu.2020.01441.
- Ghafouri-Fard S., Abak A., Talebi S.F., Shoorei H., Branicki W., Ghazavi A., Ganji A., Keshavarzian N., Rabiemajd S., Mosayebi G. Cytokine profile and disease severity in patients with COVID-19. Cytokine. 2021;137 doi: 10.1016/j.cyto.2020.155323
- Ghafouri-Fard S, Abak A, Talebi SF, Shoorei H, Branicki W, Taheri M, Akbari Dilmaghani N. Role of miRNA and lncRNAs in organ fibrosis and aging. Biomed Pharmacother. 2021а Nov;143:112132. doi: 10.1016/j.biopha.2021.112132.
- Gong Y.P., Zhang Y.W., Su X.Q., Gao H.B. Inhibition of long noncoding RNA MALAT1 suppresses high glucose-induced apoptosis and inflammation in human umbilical vein endothelial cells by suppressing the NF-κB signaling pathway. Biochem. Cell. Biol. 2020;98(6):669–675. doi: 10.1139/bcb-2019-0403.
- Hadjadj J., Yatim N., Barnabei L., Corneau A., Boussier J., Smith N., et al. Impaired type I interferon activity and inflammatory responses in severe COVID-19 patients. Science. 2020;369(6504):718–724. doi: 10.1126/science.abc6027.
- Huang F., Su Z., Yang J., Zhao X., and Xu Y., "Downregulation of lncRNA NEAT1 interacts with miR-374b-5p/PGAP1 axis to aggravate the development of osteoarthritis," J Orthop Surg Res, vol. 18, no. 1, Dec. 2023, doi: 10.1186/s13018-023-04147-z
- Huang K., Wang C., Vagts C., Raguveer V., Finn P.W., Perkins D.L. Long non-coding RNAs (lncRNAs) NEAT1 and MALAT1 are differentially expressed in severe COVID-19 patients: an integrated single-cell analysis. PLoS One. 2022;17(1) doi: 10.1371/journal.pone.0261242
- Huang, K.; Wang, C.; Vagts, C.; Raguveer, V.; Finn, P.W.; Perkins, D.L., LncRNAs NEAT1 and MALAT1 differentiate inflammation in severe COVID-19 patients. medRxiv. 2021
- Huyut M.T., Huyut Z., Ilkbahar F., Mertoğlu C. What is the impact and efficacy of routine immunological, biochemical and hematological biomarkers as predictors of COVID-19 mortality? Int. Immunopharmacol. 2022;105:108542. doi: 10.1016/j.intimp.2022.108542
- Huyut M.T., Huyut Z.J.H. Effect of ferritin, INR, and d-dimer immunological parameters levels as predictors of COVID-19 mortality: a strong prediction with the decision trees. Heliyon. 2023;9(3) doi: 10.1016/j.heliyon.2023.e14015.
- Ismail NM, Toraih EA, Almars AI, Al Ageeli E, Fawzy MS, Maher SA. Genotype Triad for HOTAIR rs10783618, LINC-ROR rs1942347, and MALAT1 rs3200401 as Molecular Markers in Systemic Lupus Erythematous. Diagnostics (Basel). 2022 May 11;12(5):1197. doi: 10.3390/diagnostics12051197. PMID: 35626352; PMCID: PMC9139987.
- Iwasaki A., Pillai P.S. Innate immunity to influenza virus infection. Nat. Rev. Immunol. 2014;14(5):315–328. doi: 10.1038/nri3665.
- Kesheh M.M., Mahmoudvand S., Shokri S. Long noncoding RNAs in respiratory viruses: a review. Rev. Med. Virol. 2022;32(2):e2275. doi: 10.1002/rmv.2275.
- McPherson R., Pertsemlidis A., Kavaslar N., Stewart A., Roberts R., Cox D.R., et al. A common allele on chromosome 9 associated with coronary heart disease. Science. 2007;316(5830):1488–1491. doi: 10.1126/science
- Mertoglu C., Huyut M.T., Arslan Y., Ceylan Y., Coban T.O.C., Investigation L. How do routine laboratory tests change in coronavirus disease 2019? Scand. J. Clin. Lab. Invest. 2021;81(1):24–33. doi: 10.1080/00365513.2020.1855470
- Meydan C., Madrer N., and Soreq H., "The Neat Dance of COVID-19: NEAT1, DANCR, and Co-Modulated Cholinergic RNAs Link to Inflammation," Front Immunol, vol. 11, Oct. 2020,а doi: 10.3389/fimmu.2020
- Nguyen, J. David, S. Maden Human leukocyte antigen susceptibility map for SARS-CoV-2 [published online ahead of print April 17, 2020]. J. Virol. 2023.510:20.
- Nile S.H., Nile A., Qiu J., Li L., Jia X., Kai G. COVID-19: pathogenesis, cytokine storm and therapeutic potential of interferons. Cytokine Growth Factor Rev. 2020;53:66–70. doi: 10.1016/j.cytogfr.2020.05.002
- Ouyang J., Hu J., Chen J.L. lncRNAs regulate the innate immune response to viral infection. Wiley Interdiscip. Rev. RNA. 2016;7(1):129–143. doi: 10.1002/wrna.1321.
- Pan Q., Zhao Z., Liao Y., Chiu S.H., Wang S., Chen B., et al. Identification of an interferon-stimulated long noncoding RNA (LncRNA ISR) involved in regulation of influenza A virus replication. Int. J. Mol. Sci. 2019;20(20):5118. doi: 10.3390/ijms20205118.
- Pan Y. et al., "Novel Insights into the Emerging Role of Neat1 and Its Effects Downstream in the Regulation of Inflammation," 2022, Dove Medical Press Ltd. doi: 10.2147/JIR.S338162
- Qing C, Chen H, Huang S, Zhang J, Zhou C, Zhang S, Luo K, Wang C, Hu Z, Yang Y, Zhou J, Zeng Z. NEAT1 drives SARS-CoV-2 N protein-induced inflammation, metabolic reprogramming, and mitochondria-ER stress crosstalk. Sci Rep. 2026 Feb 25;16(1):11045. doi: 10.1038/s41598-026-40957-x. PMID: 41741549; PMCID: PMC13043739.
- Rodrigues A. C. et al., "NEAT1 and MALAT1 are highly expressed in saliva and nasopharyngeal swab samples of COVID-19 patients," Mol Oral Microbiol, vol. 36, no. 6, pp. 291–294, Dec. 2021, doi: 10.1111/omi.12351
- Schneider W.M., Chevillotte M.D., Rice C.M. Interferon-stimulated genes: a complex web of host defenses. Annu. Rev. Immunol. 2014;32:513–545. doi: 10.1146/annurev-immunol-032713-120231.
- Shoraka S., Ferreira M.L.B., Mohebbi S.R., Ghaemi A. SARS-CoV-2 infection and Guillain-Barré syndrome: a review on potential pathogenic mechanisms. Front. Immunol. 2021;12:1636. doi: 10.3389/fimmu.2021.674922
- Sohn K.M., Lee S.G., Kim H.J., Cheon S., Jeong H., Lee J., et al. COVID-19 patients upregulate toll-like receptor 4-mediated inflammatory signaling that mimics bacterial sepsis.
- Tang H., Gao Y., Li Z., Miao Y., Huang Z., Liu X., et al. The noncoding and coding transcriptional landscape of the peripheral immune response in patients with COVID-19. Clin. Transl. Med. 2020;10(6):e200. doi: 10.1002/ctm2.200
- Tayel S. I., El-Masry E. A., Abdelaal G. A., Shehab-Eldeen S., Essa A., and Muharram N. M., "Interplay of LncRNAs NEAT1 and TUG1 in Incidence of Cytokine Storm in Appraisal of COVID-19 Infection," Int J Biol Sci, vol. 18, no. 13, pp. 4901–4913, 2022, doi: 10.7150/ijbs.72318
- Wasilewski P. G., Mruk B., Mazur S., Półtorak-Szymczak G., Sklinda K., and Walecki J., "COVID-19 severity scoring systems in radiological imaging – A review," 2020, Medical Science International. doi: 10.5114/pjr.2020.98009
- Wu Y., Zhao T., Deng R., Xia X., Li B., Wang X. A study of differential circRNA and lncRNA expressions in COVID-19-infected peripheral blood. Sci. Rep. 2021;11(1):1–14. doi: 10.1038/s41598-021-86134-0.
- Xia D, Yao R, Zhou P, Wang C, Xia Y, Xu S, et al. LncRNA NEAT1 reversed the hindering effects of miR-495-3p/STAT3 axis and miR-211/PI3K/AKT axis on sepsis-relevant inflammation. Mol Immunol (2020) 117:168–79. doi: 10.1016/j.molimm.2019.10.009
- Yan W.,Wu Q., Yao W., Li Y., Liu Y., Yuan J., et al. MiR-503 modulates epithelial-mesenchymal transition in silica-induced pulmonary fibrosis by targeting PI3K p85 and is sponged by lncRNA MALAT1. Sci Rep. 2017;7(1):11313. DOI: 10.1038/s41598-017-11904-8
- Yang H., Liang N., Wang M., Fei Y., Sun J., Li Z., et al. Long noncoding RNA MALAT-1 is a novel inflammatory regulator in human systemic lupus erythematosus. Oncotarget. 2017 2017 Aug 24;8(44):77400-77406. doi: 10.18632/oncotarget.20490.
- Zeynab Rahni , Seyed Masoud Hosseinib, Shabnam Shahrokh, Mahsa Saeedi Niasar, Shahrzad Shoraka , Hamed Mirjalali, Ehsan Nazemalhosseini-Mojarad, Mohammad Rostami-Nejad, Habib Malekpour, Mohammad Reza Zali, Seyed Reza Mohebbi. Long non-coding RNAs ANRIL, THRIL, and NEAT1 as potential circulating biomarkers of SARS-CoV-2 infection and disease severity Virus Res. 2023 Sep 11;336:199214. doi: 10.1016/j.virusres.2023.199214
- Zhang P., Wu W., Chen Q., Chen M. Non-Coding RNAs and their Integrated Networks. J Integr Bioinform. 2019;16(3):20190027. DOI:10.1515/jib-2019-0027.
- Zhou X., Han X., Wittfeldt A., Sun J., Liu C., Wang X., et al. Long non-coding RNA ANRIL regulates inflammatory responses as a novel component of NF-κB pathway. RNA Biol. 2016;13(1):98–108. doi: 10.1080/15476286.2015.1122164.
- Zhou Z., Ren L., Zhang L., Zhong J., Xiao Y., Jia Z., et al. Heightened innate immune responses in the respiratory tract of COVID-19 patients. Cell Host Microbe. 2020;27(6):883–890. doi: 10.1016/j.chom.2020.04.017. e2.
Статья поступила в редакцию 10 июня 2026 г.
Поступила после доработки 24 июня 2026 г.
Принята к печати 28 июня 2026 г.
Received 10, June, 2026
Revised 24, June, 2026
Accepted 28, June, 2026