

Введение
Коронавирусная болезнь 2019 года (COVID-19), вызываемая SARS-CoV-2, в марте 2020 года перешла в стадию пандемии; по данным портала AREPPIM на 28.12.2025, зарегистрировано порядка 779 млн подтверждённых случаев заражения и более 7,1 млн смертей. Течение инфекции варьирует от бессимптомного до жизнеугрожающего, что определяется не только общими факторами риска (пол, возраст, повышенный индекс массы тела, сопутствующие заболевания), но и полиморфизмом генов, участвующих во входе и репликации вируса, а также в формировании врождённого и адаптивного иммунного ответа – Toll-подобных рецепторов, HLA, ACE2, TMPRSS2 (Pastor et al., 2023). До сих пор неясно, какие именно SNP и в какой степени определяют тяжесть заболевания (Dieter et al., 2022), а их выявление имеет как биологическое, так и терапевтическое значение (Кантемирова, Василькова, 2022).
Однонуклеотидный полиморфизм (SNP) – наиболее распространённая форма изменчивости генома человека, встречающаяся в среднем 1 раз на 50-1000 нуклеотидов; в базе dbSNP NCBI на начало 2026 года описано более 1,17 млрд уникальных вариантов. SNP в генах иммунного ответа, в частности семейства TLR, способны модулировать восприимчивость к инфекциям (Chen et al., 2021), при этом отдельные варианты часто оказывают слабый эффект, тогда как их сочетания могут действовать синергетически (Антонцева и др., 2023; Esmaeili et al., 2023).
Помимо наследуемых различий, геном человека подвержен постзиготическим мутационным событиям – соматическому мозаицизму, при котором геном клеток различается в пределах одной ткани и между тканями одного организма (Otsuka et al., 2024). Истинный масштаб мозаичности по SNP и её вклад в риск заболеваний изучены недостаточно (Acuna-Hidalgo et al., 2015; De, 2011), при этом показано, что мозаицизм в клетках иммунной системы может влиять на течение иммуноопосредованных заболеваний (Aluri, Cooper, 2023; Van Horebeek, Dubois, Goris, 2019). Появились данные о связи хромосомного мозаицизма с более тяжёлым течением COVID-19 (Pérez-Jurado et al., 2024), однако исследований мозаицизма по SNP при этом заболевании ранее не проводилось.
В работе выбраны три гена с различной функциональной ролью в патогенезе COVID-19. GNB3 (12p13.31) кодирует β3-субъединицу G-белка; аллель T полиморфизма 825C>T (rs5443) приводит к образованию гиперактивного сплайс-варианта Gβ3-s и связан с усилением GPCR-опосредованной сигнализации, в том числе в иммунных клетках (Möhlendick et al., 2022; Siffert et al., 1998). ACE2 (Xp22.2) – рецептор для S-белка SARS-CoV-2 и ключевой компонент ренин-ангиотензиновой системы; интронный вариант 15564667C>T (rs2074192) не меняет структуру белка, но может влиять на экспрессию гена и сплайсинг РНК и ассоциирован с повышенной летальностью при COVID-19 (Sheikhian et al., 2023; Hamet et al., 2021). TLR3 (4q35.1) кодирует рецептор, распознающий двуцепочечную РНК вирусов и запускающий продукцию интерферонов I типа (Абрамова и др., 2023);
Кровь остаётся наиболее доступным материалом для генетических исследований, но её клеточный состав подвержен возрастной клональной перестройке (Lee-Six et al., 2018), тогда как буккальный эпителий – первая ткань, контактирующая с вирусом при заражении (Subbarao, Mahanty, 2020), удобен для оценки тканеспецифических различий благодаря легкодоступности и относительно однородному клеточному составу (Прошин, 2019; Thorpe et al., 2020).
Целью работы является исследование ассоциации мутаций Leu412Phe (TLR3), 15564667C>T (ACE2) и 825C>T (GNB3), а также возможного мозаицизма клеток крови и буккального эпителия по этим заменам, с тяжестью течения COVID-19.
Материал и методы
Материалом послужили парные образцы ДНК, выделенные из клеток крови и буккального эпителия 75 пациентов (42 женщины, 33 мужчины, 22-82 года), перенёсших COVID-19 в лёгкой (30), среднетяжёлой (15) и тяжёлой (30) форме.
ДНК из крови выделяли термокоагуляционным методом с использованием реагента «ДНК-экспресс кровь» (Литех, Россия), из буккального эпителия сорбентным методом с использованием набора реагентов «ДНК-сорб-АМ» (АмплиСенс, Россия). Генотипирование по Leu412Phe (TLR3) и 825C>T (GNB3) проводили методом аллель-специфичной ПЦР с реагентами SNP-экспресс (Литех) согласно инструкции производителя. Генотипирование по 15564667C>T (ACE2) проводили с использованием праймеров (F-1: 5’-GGAAATGTATAAATGGTTGTT-3’; F-2: 5’-GGAAATGTATAAATGGTTGTC-3’; R: 5’-ATTTGATATAAAGTCATTGTAGATG-3’) и реагентов фирмы Синтол. Амплификацию проводили по следующей программе: начальная денатурация при температуре 92,6 °С; далее выполняли 40 циклов, каждый из которых включал денатурацию при 93 °С в течение 20 с, отжиг праймеров при 55 °С в течение 30 с и элонгацию при 72 °С в течение 30 с. Продукты амплификации разделяли электрофорезом в 2,5%-м агарозном геле с бромистым этидием и визуализировали на УФ-трансиллюминаторе (310 нм); генотип каждого образца определяли по наличию продукта в лунках с праймерами на соответствующий аллель.
Статистическую обработку проводили в программе InStat3: различия частот генотипов и аллелей между тканями и группами оценивали по критерию χ² (значимыми считали различия при p <0,05). Статистическую значимость различий долевых показателей оценивали по критерию Стьюдента. Анализ межлокусных взаимодействий выполняли в программе MDR 3.0.2 с оценкой моделей по показателям воспроизводимости (CV Consistency) и отношения шансов (Odds Ratio, OR).
Результаты исследования и их обсуждение
По полиморфизму 1234C>T (Leu412Phe) гена TLR3 в общей выборке образцов (75 пар образцов) преобладающим генотипом для клеток крови являлась гетерозиготность CT (46,7 %), в эпителии – гомозиготность по аллелю С (52 %); в обеих тканях преобладал аллель С (68,7 % в клетках крови, 75,3 % - в эпителии). Различия в частотах генотипов и аллелей между тканями статистически не значимы (p >0,05). При разделении на группы по тяжести течения COVID-19 статистически значимых различий между тканями и подгруппами также не выявлено (p >0,05 во всех случаях). Таким образом, в изученной нами выборке значимой ассоциации Leu412Phe гена TLR3 с тяжестью течения COVID-19 не установлено.
Миссенс-мутация 1234C>T снижает эффективность связывания TLR3 с дцРНК (Абубакирова, Сташкевич, Евдокимов, 2025), однако данные о её связи с тяжестью COVID-19 в литературе противоречивы (Silva et al., 2025; Parsania et al., 2024).
Сопоставление парных образцов выявило совпадение генотипа по полиморфизму 1234C>T (Leu412Phe) гена TLR3 в 43 из 75 пар (57,3 %); в 32 парных образцах (42,7 %) обнаружен мозаицизм. Доля мозаиков была сопоставима во всех группах тяжести заболевания (46,6 % в лёгкой и средней, 36,6 % в тяжёлой), статистически значимых различий не выявлено. Связи частоты мозаицизма с возрастом пациентов также не установлено.
По полиморфизму 15564667C>T гена ACE2 преобладающим в обеих тканях является генотип TТ (41,3 % в крови, 43,3 % в эпителии) и аллель Т (59 % и 56 % соответственно); различия в частотах генотипов и аллелей между тканями не значимы.
По группам тяжести распределение генотипов носило нелинейный характер: в группах с лёгким и тяжёлым течением COVID-19 преобладал генотип ТТ, тогда как в средней группе чаще встречался генотип СС; различия между подгруппами по частотам генотипов статистически не значимы.
Частота аллеля T в клетках эпителия пациентов тяжёлой группы значимо превышала таковую для пациентов со средним течением COVID-19 (p = 0,0396) (рисунок 1). Такая нелинейность может отражать контекст-зависимый эффект варианта rs2074192: при умеренной вирусной нагрузке генотип CT способен поддерживать защитную ось ACE2/Ang-(1-7)/Mas, тогда как при более высокой вирусной нагрузке тот же генотип может способствовать более эффективному проникновению вируса (Sabater Molina, 2022; Sheikhian et al., 2023); дополнительную роль может играть локализация гена на X-хромосоме (Sheikhian et al., 2023). У мужчин, имеющих единственную копию гена, действие аллеля T может проявляться более выраженно, что потенциально связано с повышенным риском тяжёлого течения заболевания и согласуется с литературными данными (Sheikhian et al., 2023). Аллель T ранее связывали с худшими исходами COVID-19 (Hamet et al., 2021), что согласуется с её значимым преобладанием в эпителии пациентов с тяжелым течением COVID-19.
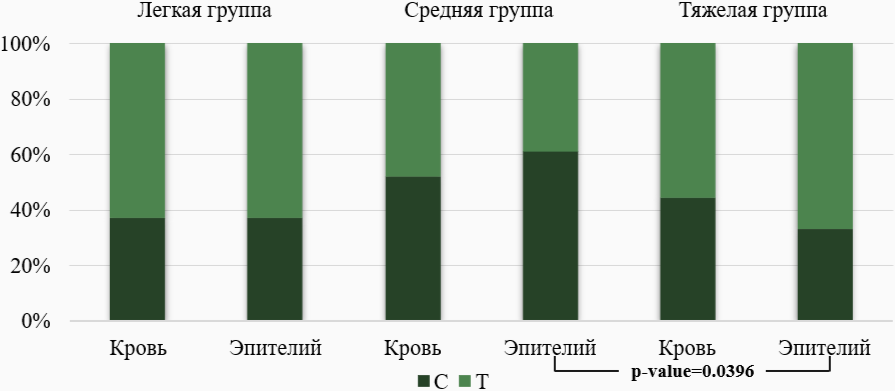
Рисунок 1 – Распределение частоты аллелей C и T по полиморфизму 15564667C>T в гене ACE2 в зависимости от тяжести течения COVID-19
Мозаицизм по 15564667C>T ACE2 выявлен в 17 из 60 пар (28,3 %) без значимой связи с тяжестью заболевания.
Для общей группы всех 75 пар образцов по полиморфизму 825C>T гена GNB3 выявлены статистически значимые различия между тканями в частотах генотипов и аллелей (p <0,0001): в клетках крови преобладал генотип CT (45,3 %) и аллель С (64 %), тогда как в эпителии заметно выше частота генотипа TT (40 % против 9,3 % СС) и аллеля T (65,3 %) (рисунок 2). Частота аллеля C в клетках крови (64 %) близка к популяционной частоте, характерной для европейской популяции (68 % по данным проекта «1000 геномов» (The 1000 Genomes Project)), тогда как в клетках эпителия наблюдается практически противоположное распределение. Такое различие может быть связано с высокой скоростью обновления эпителиальных клеток и тропизмом вируса к эпителию слизистых оболочек (Sungnak et al., 2020), в сочетании с особенностями GPCR-сигнализации, ассоциированными с аллелем T (Möhlendick et al., 2022).
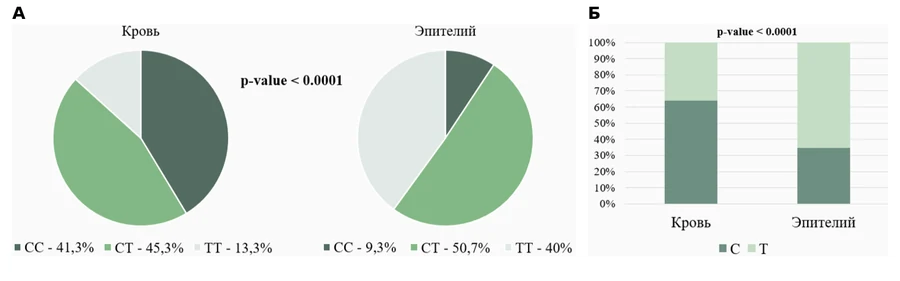
Рисунок 2 – Распределение частот генотипов (А) и аллелей (Б) по полиморфизму 825C>T в гене GNB3
Различия между тканями по частотам генотипов и аллелей полиморфизма 825C>T гена GNB3 сохранялись и при сравнении подгрупп, отличающихся по степени тяжести течения COVID-19, нарастая по мере утяжеления течения заболевания (по генотипам – значимо в средней (p = 0,0045) и тяжёлой (p = 0,0012) группах; по аллелям – во всех группах, от p = 0,028 в лёгкой до p = 0,0009 в тяжёлой) (рисунок 3). Генотип TT, преобладающий в эпителии, ранее связывали с более сбалансированным Т-клеточным ответом и защитой от летального исхода COVID-19 (Möhlendick et al., 2022; Čiučiulkaitė et al., 2022), что согласуется с его преобладанием в ткани, первично контактирующей с вирусом.
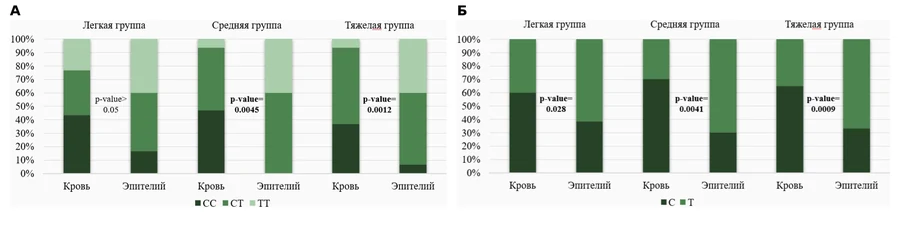
Рисунок 3 – Распределение частот генотипов (А) и аллелей (Б) по полиморфизму 825C>T в гене GNB3 в зависимости от тяжести течения COVID-19
В отличие от TLR3 и ACE2, мозаицизм по исследуемому полиморфизму GNB3 выявлен более чем в половине пар (42 из 75, 56 %) и его частота нарастала с утяжелением заболевания – от 40 % в группе с лёгким течением COVID-19 до 60 % и 70 % в группах со средним и тяжёлым течением заболевания соответственно (p <0,05 для всех сравнений) (рисунок 4). Это согласуется с представлением о связи доли мутантных клеток с тяжестью воспалительных заболеваний (Diab et al., 2025) и может отражать клональную экспансию мозаичных клеток на фоне выраженного воспалительного ответа.
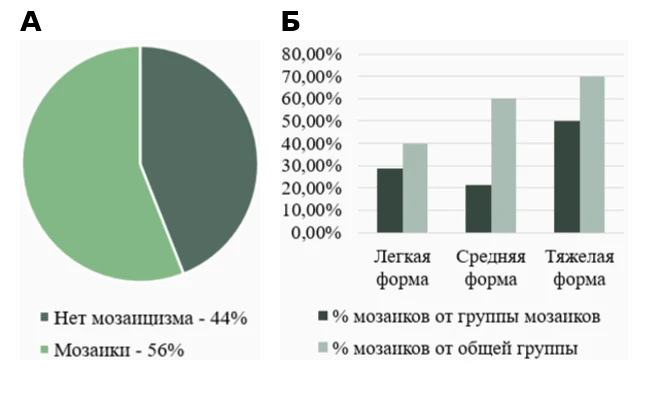
Рисунок 4 – Частота встречаемости мозаицизма по 825C>T в гене GNB3 в парных образцах ДНК (А) и по группам тяжести течения заболевания (Б)
Поскольку однофакторный анализ не выявил значимой ассоциации отдельных SNP с тяжестью COVID-19 (за отдельными исключениями), был проведён MDR-анализ, позволяющий оценить совместный вклад локусов и нелинейные эффекты их взаимодействия. В модели № 1 (лёгкое течение – контроль, среднее и тяжёлое течение объединены в группу сравнения) наибольший вклад в обеих тканях вносил исследуемый локус ACE2 (33,80 % в крови, 33,32 % в эпителии), вклад GNB3 был умеренным (5,17 % и 3,24 %), а TLR3 минимальным (0,28 % и 2,03 %) (рисунок 5, А). Модель взаимодействия локусов является статистически значимой (таблица 3).
В модели № 2, построенной только для пациентов с мозаицизмом хотя бы по одному локусу, вклад ACE2 оставался высоким (33,68 % в крови, 32,85 % в эпителии), вклад GNB3 снижался (до 4,73 % и 0,67 %), а вклад TLR3 в крови возрастал – с 0,28 % до 3,25 % (рисунок 5, Б; таблица 4). Таким образом, доминирующая роль ACE2 в определении тяжести COVID-19 сохраняется независимо от наличия мозаицизма, тогда как соматический мозаицизм перераспределяет вклад генов врождённого иммунитета и внутриклеточной сигнализации, повышая значимость TLR3 и снижая значимость GNB3, что указывает на нарушение межтканевой координации генетических эффектов при мозаицизме.
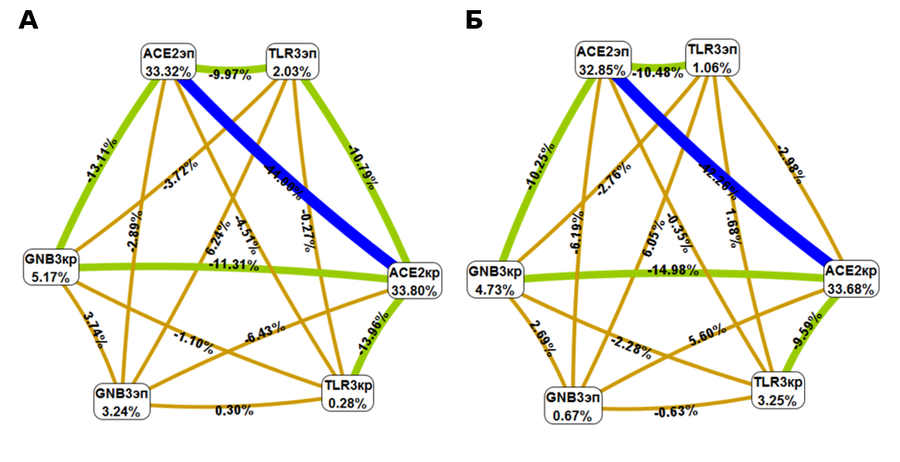
Рисунок 5 – Вклад исследуемых полиморфных локусов в тяжесть течения COVID-19 в общей группе пациентов (А) и в группе с соматическим мозаицизмом (Б)
Таблица 3 – Статистические показатели MDR-модели при сравнении пациентов с лёгким и средним/тяжёлым течением COVID-19
| Odds Ratio | χ2 | p | CV Consistency |
|---|---|---|---|
| 1276 (76 – 21220) | 66,9 | <0.0001 | 10/10 |
Таблица 4 – Статистические показатели MDR-модели при сравнении пациентов с лёгким и средним/тяжёлым течением COVID-19 при наличии соматического мозаицизма
| Odds Ratio | χ2 | p | CV Consistency |
|---|---|---|---|
| 722 (49 – 12186) | 50,4 | <0.0001 | 10/10 |
Заключение
Таким образом, исследованные полиморфные локусы в основном не демонстрируют самостоятельной связи с тяжестью COVID-19, однако выявленные межтканевые различия и ассоциация мозаицизма GNB3 с тяжестью заболевания указывают на тканеспецифичность генетических эффектов. MDR-анализ показал, что тяжесть заболевания определяется преимущественно совокупным влиянием исследованных локусов, при этом соматический мозаицизм изменяет их индивидуальный вклад.
Работа выполнена при финансовой поддержке Министерства науки и высшего образования РФ в рамках государственного задания в сфере научной деятельности № FENW-2026-0030.
Список литературы
- Абрамова Н.Д., Сощенко Т.Д., Меремьянина Е.А., Солнцева В.К., Железняк В.Н., Свитич О.А. Экспрессия рецепторов врождённого иммунитета TLR3 и TLR7 на уровне слизистых оболочек верхних дыхательных путей у пациентов с тяжёлой формой COVID-19 // Терапия. – 2023. – № 2. – С. 7-13.
- Абубакирова Э.А., Сташкевич Д.С., Евдокимов А.В. Миссенс-мутация 1234C>T гена Toll-подобного рецептора 3 при неспецифическом язвенном колите // Российский иммунологический журнал. – 2025. – Т. 28, № 1. – С. 123-128.
- Антонцева Е.В., Дегтярева А.О., Корболина Е.Е., Дамаров И.С., Меркулова Т.И. Однонуклеотидные замены в геноме человека, влияющие на связывание факторов транскрипции, и их роль в развитии патологий // Вавиловский журнал генетики и селекции. – 2023. – Т. 27, № 6. – С. 662-675.
- Кантемирова Б.И., Василькова В.В. Полиморфизм генов у больных новой коронавирусной инфекцией COVID-19 // Инфекционные болезни: новости, мнения, обучение. – 2022. – Т. 11, № 3. – С. 130-137.
- Прошин А.Г., Дурнова Н.А., Сальников В.Н., Курчатова М.Н., Сальников Н.В. Буккальный эпителий как отражение физиологических и патофизиологических процессов // Вестник медицинского института «Реавиз»: реабилитация, врач и здоровье. – 2019. – № 1 (37). – С. 74-78.
- Acuna-Hidalgo R., Bo T., Kwint M.P., van de Vorst M., Pinelli M., Veltman J.A., Hoischen A., Vissers L.E.L.M., Gilissen C. Post-zygotic point mutations are an underrecognized source of de novo genomic variation // American Journal of Human Genetics. – 2015. – V. 97, № 1. – P. 67-74.
- Aluri J., Cooper M.A. Somatic mosaicism in inborn errors of immunity: current knowledge, challenges, and future perspectives // Seminars in Immunology. – 2023. – V. 67. – 24 p.
- Chen A.Y., Huang C.W., Liu S.H., Liu A.C., Chaung H.C. Single nucleotide polymorphisms of immunity-related genes and their effects on immunophenotypes in different pig breeds // Genes (Basel). – 2021. – V. 12, № 9. – 17 p.
- Čiŭčiulkaitė I., Möhlendick B., Thümmler L., Fisenkci N., Elsner C., Dittmer U., Siffert W., Lindemann M. GNB3 c.825C>T polymorphism influences T-cell but not antibody response following vaccination with mRNA-1273 vaccine // Frontiers in Genetics. – 2022. – V. 13. – 7 p.
- De S. Somatic mosaicism in healthy human tissues // Trends in Genetics. – 2011. – V. 27, № 6. – P. 217-223.
- Diab F., Louvrier C., Fabre M., Lin C., Rabbaa M. et al. Somatic mosaic NLRC4 variants in autoinflammatory diseases: functional characterization and correlation of mosaicism levels with disease age of onset and severity // Journal of Clinical Immunology. – 2025. – V. 45. – 9 p.
- Dieter C., Brondani L.d.A., Leitão C.B., Gerchman F., Lemos N.E., Crispim D. Genetic polymorphisms associated with susceptibility to COVID-19 disease and severity: a systematic review and meta-analysis // PLOS ONE. – 2022. – V. 17, № 7. – 23 p.
- Esmaeili F., Narimani Z., Vasighi M. Discovering SNP-disease relationships in genomewide SNP data using an improved harmony search based on SNP locus and genetic inheritance patterns // PLOS ONE. – 2023. – V. 18, № 10. – 18 p.
- Hamet P., Pausova Z., Attaoua R., Hishmih C., Haloui M. et al. SARS-CoV-2 receptor ACE2 gene is associated with hypertension and severity of COVID-19: interaction with sex, obesity, and smoking // American Journal of Hypertension. – 2021. – V. 34, № 4. – P. 367-376.
- Lee-Six H., Øbro N.F., Shepherd M.S., Grossmann S., Dawson K. et al. Population dynamics of normal human blood inferred from somatic mutations // Nature. – 2018. – V. 561, № 7724. – P. 473-478.
- Möhlendick B., Schönfelder K., Zacher C., Elsner C., Rohn H. et al. The GNB3 c.825C>T (rs5443) polymorphism and protection against fatal outcome of corona virus disease 2019 (COVID-19) // Frontiers in Genetics. – 2022. – V. 13. – 8 p.
- Otsuka I., Uchiyama S., Shirai T., Liu X., Takahashi M. et al. Increased somatic mosaicism in autosomal and X chromosomes for suicide death // Molecular Psychiatry. – 2024. – V. 30, № 3. – P. 881-888.
- Parsania M., Seyed Khorrami S.M., Hasanzad M., Parsania N., Nagozir S. et al. Association of polymorphisms in TLR3 and TLR7 genes with susceptibility to COVID-19 among Iranian population: a retrospective case-control study // Iranian Journal of Microbiology. – 2024. – V. 16, № 1. – P. 114-123.
- Pastor A.F., Docena C., Rezende A.M., Oliveira F.R.d.S., Sena M.d.A. et al. Human genome polymorphisms and computational intelligence approach revealed a complex genomic signature for COVID-19 severity in Brazilian patients // Viruses. – 2023. – V. 15, № 3. – 15 p.
- Pérez-Jurado L.A., Cáceres A., Balagué-Dobón L., Esko T., López de Heredia M. et al. Clonal chromosomal mosaicism and loss of chromosome Y in elderly men increase vulnerability for SARS-CoV-2 // Communications Biology. – 2024. – V. 7, № 1. – 14 p.
- Redondo N., Rodríguez-Goncer I., Parra P., López-Medrano F., González E. et al. Genetic polymorphisms in TLR3, IL10 and CD209 influence the risk of BK polyomavirus infection after kidney transplantation // Scientific Reports. – 2022. – V. 12. – 14 p.
- Sabater Molina M., Nicolás Rocamora E., Iborra Bendicho A., García Vázquez E., Zorio E. et al. Polymorphisms in ACE, ACE2, AGTR1 genes and severity of COVID-19 disease // PLOS ONE. – 2022. – V. 17, № 2. – 14 p.
- an F., Sadeghi Mofrad S., Tarashi S., Ghazanfari Jajin M., Sakhaee F. et al. The impact of ACE2 polymorphisms (rs1978124, rs2285666, and rs2074192) and ACE1 rs1799752 in the mortality rate of COVID-19 in different SARS-CoV-2 variants // Human Genomics. – 2023. – V. 17. – 11 p.
- Siffert W., Rosskopf D., Siffert G., Busch S., Moritz A. et al. Association of a human G-protein beta3 subunit variant with hypertension // Nature Genetics. – 1998. – V. 18, № 1. – P. 45-48.
- Silva M.J.A., Figueira L.R.T., Sardinha D.M., Costa da Cruz E., Andrade N.C.O. et al. Analyses of haplotypes of TLR2 and TLR3 genes for COVID-19 prognosis in a cohort of professionals who worked in the first pandemic wave in Belém-PA, Brazil // Frontiers in Genetics. – 2025. – V. 16. – 10 p.
- Subbarao K., Mahanty S. Respiratory virus infections: understanding COVID-19 // Immunity. – 2020. – V. 52, № 6. – P. 905-909.
- Sungnak W., Huang N., Bécavin C., Berg M., Queen R. et al. SARS-CoV-2 entry factors are highly expressed in nasal epithelial cells together with innate immune genes // Nature Medicine. – 2020. – V. 26, № 5. – P. 681-687.
- Thorpe J., Osei-Owusu I.A., Avigdor B.E., Tupler R., Pevsner J. Mosaicism in human health and disease // Annual Review of Genetics. – 2020. – V. 54. – P. 487-510.
- Van Horebeek L., Dubois B., Goris A. Somatic variants: new kids on the block in human immunogenetics // Trends in Genetics. – 2019. – V. 35, № 12. – P. 935-947.
Статья поступила в редакцию 10 июня 2026 г.
Поступила после доработки 24 июня 2026 г.
Принята к печати 28 июня 2026 г.
Received 10, June, 2026
Revised 24, June, 2026
Accepted 28, June, 2026